
Oligoseeni
Oligoseenikausi — ruohotasankojen synty, 34–23 miljoonaa vuotta sitten
Trooppiset metsät väistyivät ja avoimet tasangot levisivät. Kaikkien aikojen suurin maanisäkäs hallitsi Aasiaa, sapelihammaskissoja muistuttavat nimravidit aloittivat valtakautensa ja ensimmäiset apinat ilmestyivät Afrikkaan.
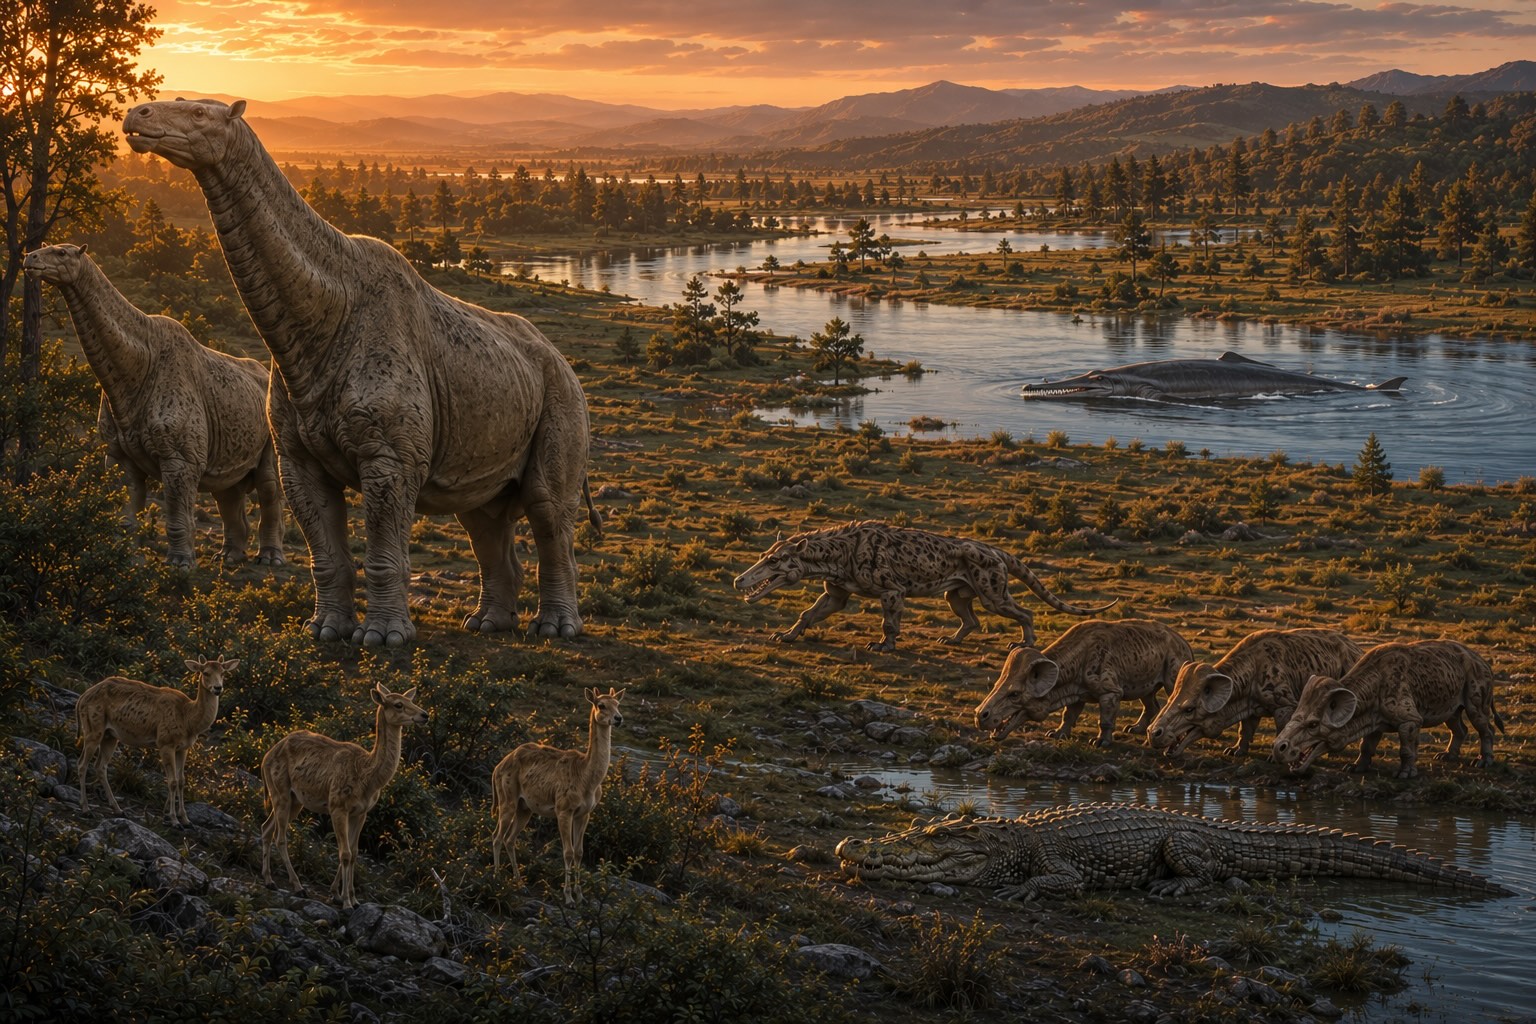
Oligoseeni — metsistä tasangoille
Oligoseeni kesti noin 34–23 miljoonaa vuotta sitten, ja se oli aikakausi, jolloin maapallon maisema alkoi muistuttaa nykyistä. Eoseenin trooppiset metsät vetäytyivät kohti päiväntasaajaa, ja niiden tilalle levisivät ensimmäistä kertaa laajat ruohotasangot. Tämä yksinkertainen muutos — puista ruohoon — mullisti koko eläinkunnan evoluution.
Oligoseeni on aikakausi, jossa kaksi maailmaa kohtaavat. Sen alkupuolella maapallolla eli vielä eoseenin arkaaisten aikojen perillisiä — outoja jättiläisiä, kreodonttipetoja ja alkukantaisia ryhmiä. Sen loppuun mennessä nämä olivat suureksi osaksi väistyneet, ja tilalle olivat nousseet ryhmät, jotka tunnistamme yhä tänään: hevoset, kamelit, kissat, koirat ja apinat. Oligoseeni on siis silta menneen ja nykyisen välillä — hetki, jolloin maailma muuttui vieraasta tutuksi.
Ilmasto viileni merkittävästi. Antarktiksen jääpeite, joka oli syntynyt eoseenin lopussa, kasvoi ja vakiintui pysyväksi, ja sen ympärikulkuvirta eristi eteläisen mantereen lopullisesti lämpimistä vesistä. Maapallon keskilämpötila laski useita asteita eoseenin huipusta, vuodenaikojen vaihtelut voimistuivat ja kuivat kaudet yleistyivät sisämaassa.
Tämä viileneminen oli jatkoa eoseenin lopun suurelle käänteelle. Kun Antarktiksen ympärille oli syntynyt keskeytymätön merivirta, se eristi mantereen ja käynnisti jäätiköitymisen, joka jäähdytti koko planeettaa. Ilmakehän hiilidioksidipitoisuus oli laskenut eoseenin huippuarvoista, ja tämä heikensi kasvihuoneilmiötä. Napa-alueiden lämpimät metsät, joissa oli vielä eoseenilla kasvanut palmuja, katosivat, ja niiden tilalle levisi viileämpään ilmastoon sopeutunut kasvillisuus. Maailma oli siirtymässä lopullisesti kohti "jäähuonetta" — sitä ilmastollista tilaa, jossa napajäätiköt ovat pysyviä ja jossa me yhä elämme.
Ruohotasankojen leviäminen muutti evoluution suuntaa perusteellisesti. Avoimella tasangolla ei voinut piiloutua puiden taakse. Menestyminen vaati nopeutta, kestävyyttä ja terävää näköaistia. Kasvinsyöjät kehittyivät nopeammiksi juoksijoiksi pitkillä jaloilla, ja pedot seurasivat perässä. Hampaistot muuttuivat: lehtien syönnistä siirryttiin kovan, piipitoisen ruohon jauhamiseen, mikä vaati korkeampia ja kestävämpiä hampaita.
Tiesitkö — Ruoho muutti kaiken
Ruoho vaikuttaa vaatimattomalta kasvulta, mutta sen leviäminen oli yksi maapallon historian merkittävimmistä ekologisista mullistuksista. Ruoho kasvaa tyvestä eikä kärjestä, joten se kestää syömistä ja polttamista. Se leviää nopeasti ja sietää kuivuutta. Ruohotasangot loivat kokonaan uuden elinympäristön, johon kehittyi oma eläimistönsä: nopeat kavioeläimet, laumassa elävät märehtijät ja niitä jahtaavat nopeat pedot. Ilman ruohoa ei olisi hevosia, antilooppeja eikä leijonien ja sutten kaltaisia laumapetoja.
Ruohon leviäminen liittyi myös ilmaston viilenemiseen ja kuivumiseen. Kun sateet vähenivät sisämaassa ja vuodenajat voimistuivat, tiheät metsät eivät enää menestyneet, mutta kuivuutta ja laidunnusta kestävä ruoho valtasi laajat alueet. Näin ilmasto ja kasvillisuus muuttivat yhdessä eläimistöä: viilenevä, kuivuva maailma synnytti ruohotasangot, ja ruohotasangot synnyttivät kokonaan uuden eläinyhteisön. Tämä ketjureaktio — ilmastosta kasveihin ja kasveista eläimiin — on hyvä esimerkki siitä, kuinka syvällisesti elottomat tekijät kuten lämpötila ja sademäärä muovaavat elävää luontoa.
Paraceratherium — kaikkien aikojen suurin maanisäkäs
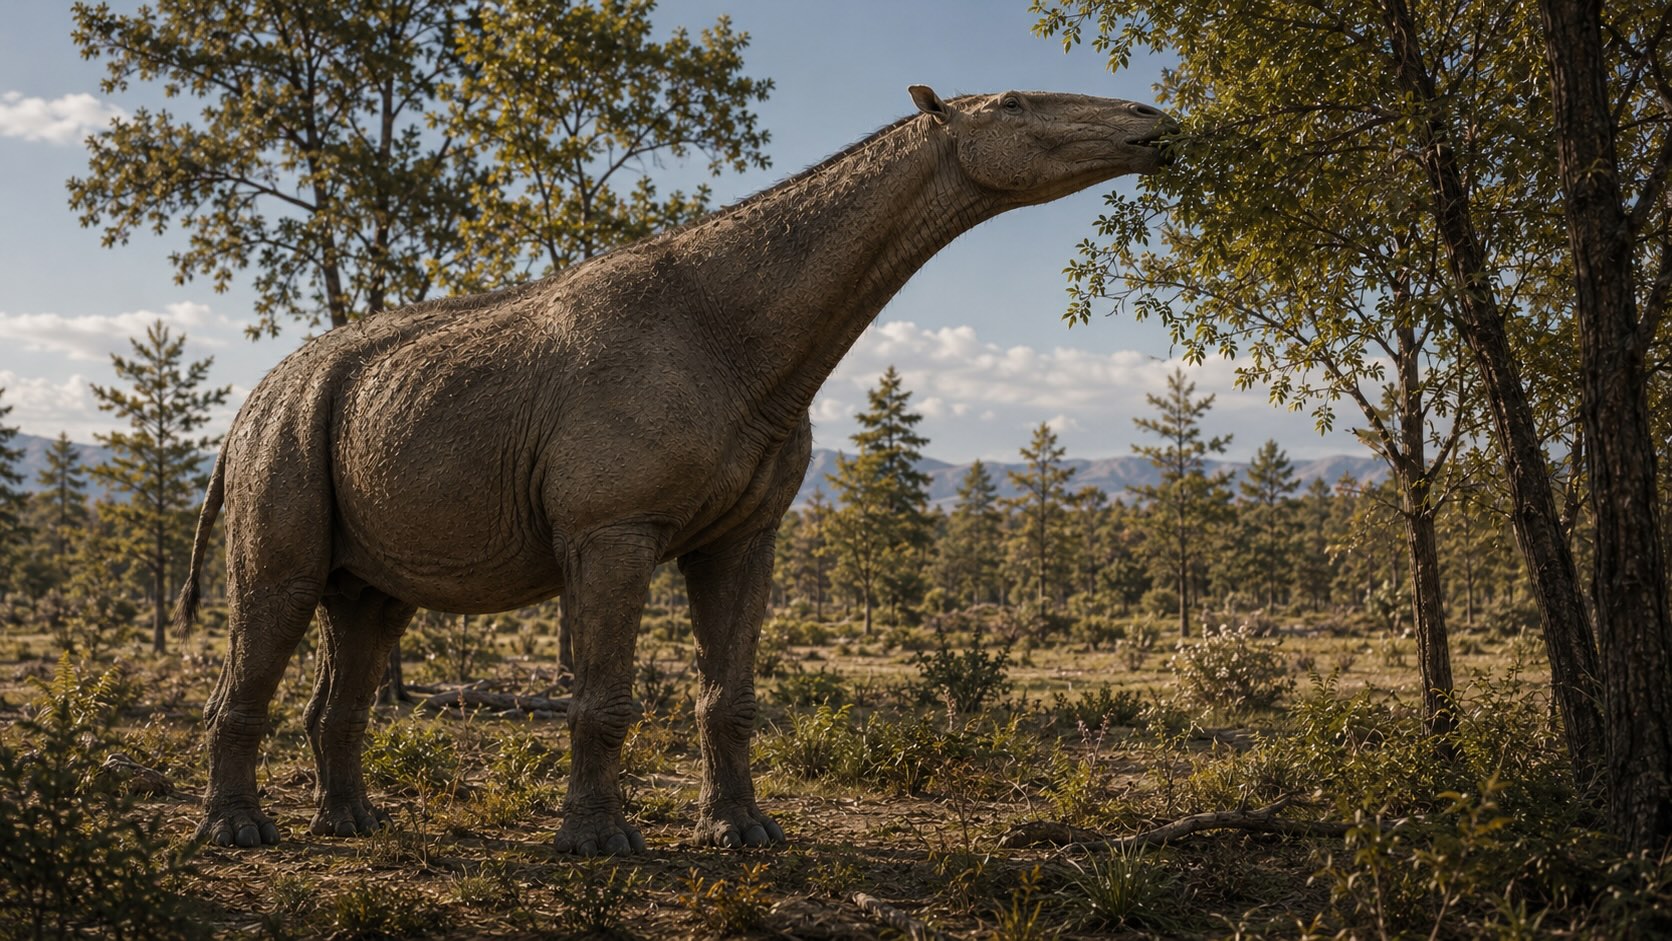
Paraceratherium (aiemmin Indricotherium) oli suurin maanisäkäs, joka on koskaan elänyt maapallolla. Tämä sarvikuonojen sukulainen eli noin 34–23 miljoonaa vuotta sitten Keski-Aasian tasangoilla ja oli mittasuhteiltaan hämmästyttävä.
Paraceratherium on jäänyt historiaan esimerkkinä siitä, kuinka suureksi maalla elävä nisäkäs voi ylipäätään kasvaa. Sen mittasuhteita on vaikea käsittää: aikuinen ihminen olisi ylettänyt hädin tuskin sen polveen. Se liikkui hitaasti ja arvokkaasti tasangoilla ja metsien reunoilla, ja sen jokainen askel oli maata tärisyttävä. Näin suuri eläin tarvitsi valtavat määrät ravintoa päivittäin, ja se vietti todennäköisesti suurimman osan valveillaoloajastaan syöden. Paraceratheriumin olemassaolo osoittaa, että kun ilmasto on suotuisa ja ravintoa on runsaasti, nisäkkäätkin voivat saavuttaa lähes uskomattomia mittasuhteita.
Paraceratherium seisoi yli 5 metriä korkeana olkapäistä — siis korkeampi olkapäistä kuin nykyinen kirahvi. Sen pää ylsi lähes 8 metrin korkeuteen, ja se painoi arviolta 15–20 tonnia, noin neljä kertaa niin paljon kuin suurin afrikkalainen norsu. Se oli sarveton, pitkäkaulainen ja pitkäjalkainen, ja se muistutti ulkonäöltään enemmän jättiläismäistä hevosta kuin sarvikuonoa.
Paraceratherium söi puiden lehtiä ja oksia, joihin se ylsi pitkän kaulansa ansiosta ilman kilpailijoita. Se on osoitus siitä, kuinka suuriksi nisäkkäät voivat kasvaa — mutta silti se jäi kauas dinosaurusten sauropodien mitoista. Suurimmat sauropodit painoivat 5–7 kertaa enemmän kuin Paraceratherium. Nisäkkäiden fysiologia — tasalämpöisyys, istukan kautta tapahtuva lisääntyminen ja imetys — asettaa rajat, joita dinosaurusten matelijabiologia ei tuntenut.
Miksi juuri sarvikuonojen sukuhaara tuotti kaikkien aikojen suurimman maanisäkkään? Vastaus liittyy ravintoon ja kilpailuun. Oligoseenin Aasiassa oli laajoja metsiä ja pensaikkoja, joiden korkeimmat lehdet olivat muiden kasvinsyöjien ulottumattomissa. Kasvamalla valtavan suureksi ja pitkäkaulaiseksi Paraceratherium saattoi hyödyntää tätä ravintovarastoa ilman kilpailua — samalla tavalla kuin kirahvi tekee nykyään, mutta paljon suuremmassa mittakaavassa. Sen valtava koko suojasi sitä myös kaikilta pedoilta: mikään oligoseenin saalistaja ei kyennyt kaatamaan täysikasvuista Paraceratheriumia. Aikuinen eläin oli käytännössä haavoittumaton, ja vain poikaset olivat vaarassa.
Tasankojen uudet eläimet — ensimmäiset hevoset, kamelit ja sarvikuonot
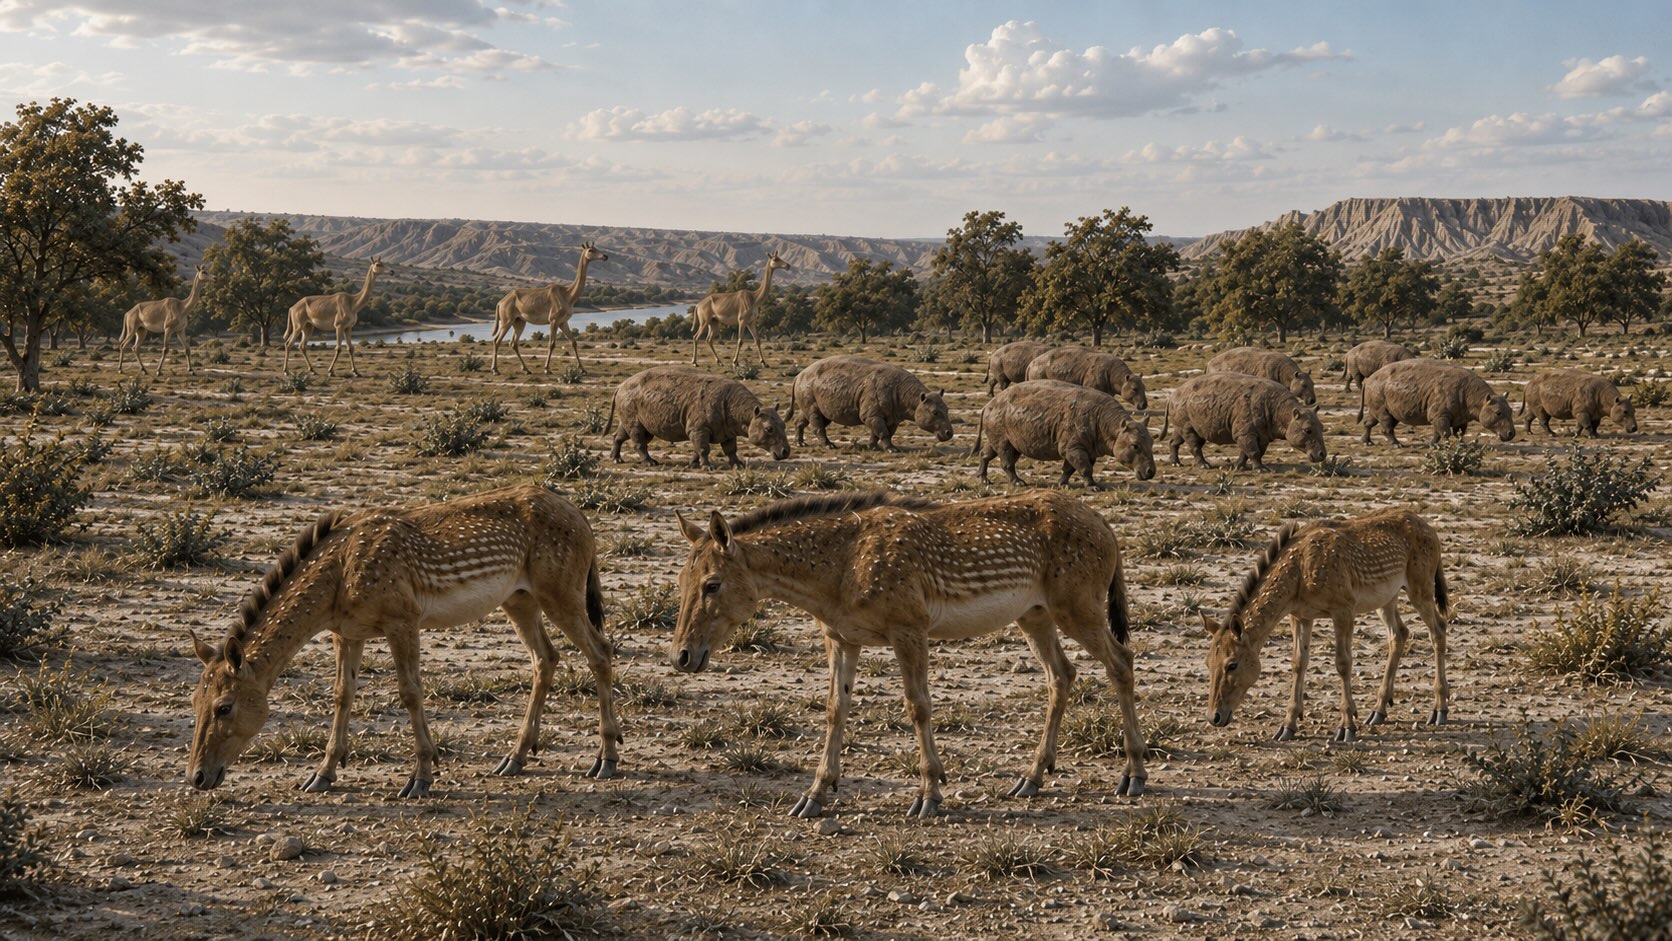
Ruohotasankojen leviäminen synnytti kokonaan uuden eläimistön — modernin tasankofaunan, jonka esi-isät nähtiin ensi kertaa oligoseenilla. Yhdysvaltojen White River Badlandsin kerrostumat ovat tallentaneet tämän maailman poikkeuksellisen rikkaana: laumoittain kavioeläimiä, jotka laidunsivat avoimilla tasangoilla ja pakenivat petoja nopeudella.
Siinä missä eoseenin metsissä oli eletty yksin tai pienissä ryhmissä tiheikön suojassa, oligoseenin avoimilla tasangoilla menestyivät nopeat, laumoissa elävät kasvinsyöjät. Tämä muutos synnytti sen eläinyhteisön perusmallin, jonka näemme yhä nykyisillä savanneilla ja preerioilla. Seuraavat eläimet — hevonen, kameli, sarvikuono ja oreodontti — kuvaavat tätä uutta tasankojen maailmaa ja sitä, kuinka nykyiset laiduneläimet saivat alkunsa.

Mesohippus oli oligoseenin hevonen — jo suurempi kuin eoseenin koiran kokoinen Hyracotherium, mutta yhä kolmivarpainen ja vasta matkalla kohti nykyistä yksikavioista hevosta. Se eli laumoissa ja söi sekä lehtiä että ruohoa. Mesohippus kuvaa täydellisesti hevosen evoluution välivaihetta: se oli jättänyt taakseen metsäneläimen ja oli sopeutumassa avoimen tasangon elämään.
Hevosen evoluutio on paleontologian klassikko, ja Mesohippus on siinä keskeinen välivaihe. Eoseenin Hyracotherium oli ollut pieni, monivarpainen metsäneläin, kun taas oligoseenin Mesohippus oli jo suurempi, pidempijalkainen ja selvästi paremmin juoksuun sopeutunut. Sillä oli yhä kolme varvasta, mutta paino lepäsi yhä enemmän keskimmäisellä, joka oli matkalla kohti tulevaa kaviota. Mesohippus eli edelleen osittain metsässä, mutta se oli askel kohti avoimen tasangon nopeaa laumaeläintä. Vasta myöhemmillä aikakausilla, kun ruohotasangot levisivät entisestään, hevoset kehittyivät täysin yksikavioisiksi ja korkeahampaisiksi ruohonsyöjiksi.
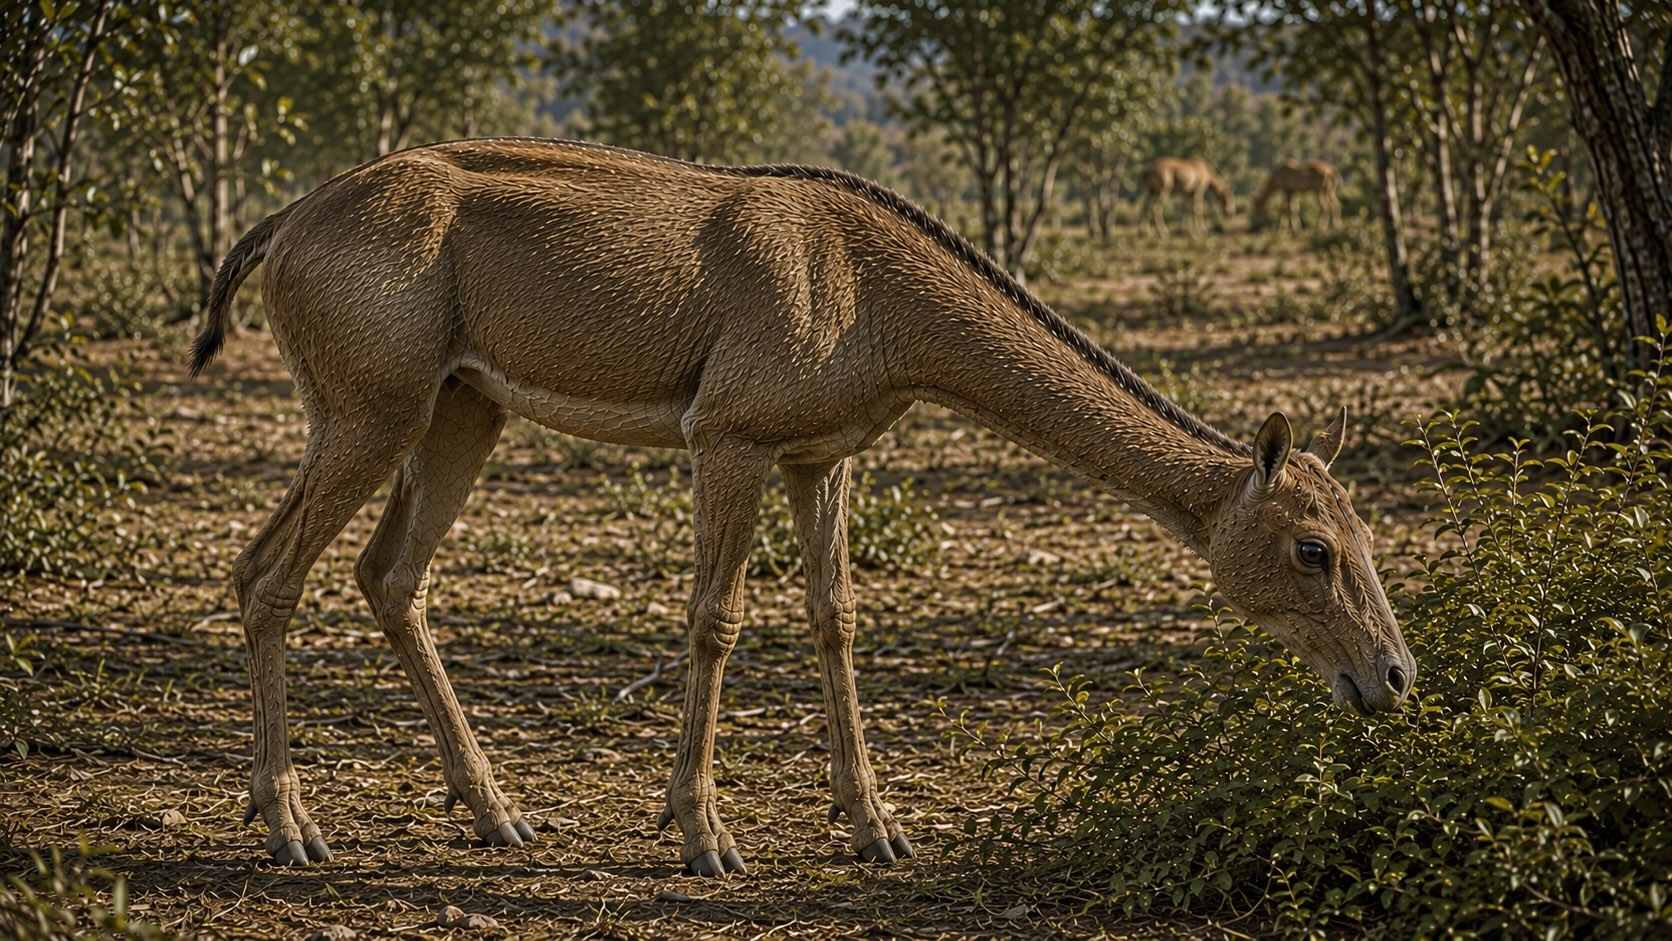
Yllättävää kyllä, kamelit eivät ole kotoisin Aasiasta vaan Pohjois-Amerikasta. Poebrotherium oli yksi varhaisimmista kameleista — hoikka, gasellimainen eläin, joka juoksi oligoseenin tasangoilla. Vasta paljon myöhemmin kamelit levisivät Aasiaan ja Afrikkaan sekä Etelä-Amerikkaan (laamat ja alpakat), ja niiden alkuperäiseltä mantereelta Pohjois-Amerikasta ne lopulta katosivat. Poebrotherium on muistutus siitä, että eläinten nykyinen levinneisyys ei kerro niiden alkuperästä.
Kamelien tarina on yksi paleontologian yllättävimmistä. Nykyään kamelit yhdistetään Aasian ja Afrikan aavikoihin sekä Etelä-Amerikan vuoristoihin, mutta niiden koko varhainen kehitys tapahtui Pohjois-Amerikassa. Siellä kehittyi kymmeniä kamelilajeja — pieniä gasellimaisia, korkeita kirahvimaisia ja kaikkea siltä väliltä. Vasta viime jääkausien aikoihin kamelit levisivät Aasiaan Beringin maasiltaa pitkin ja Etelä-Amerikkaan Panaman kannaksen kautta, ja lopulta ne katosivat kokonaan alkuperäiseltä mantereeltaan Pohjois-Amerikasta. Poebrotherium oli tämän pitkän tarinan varhaisia lukuja — vaatimaton, hoikkajalkainen eläin, joka ei vielä muistuttanut nykyistä kyttyräselkäistä kamelia mutta kantoi jo sen sukuperää.
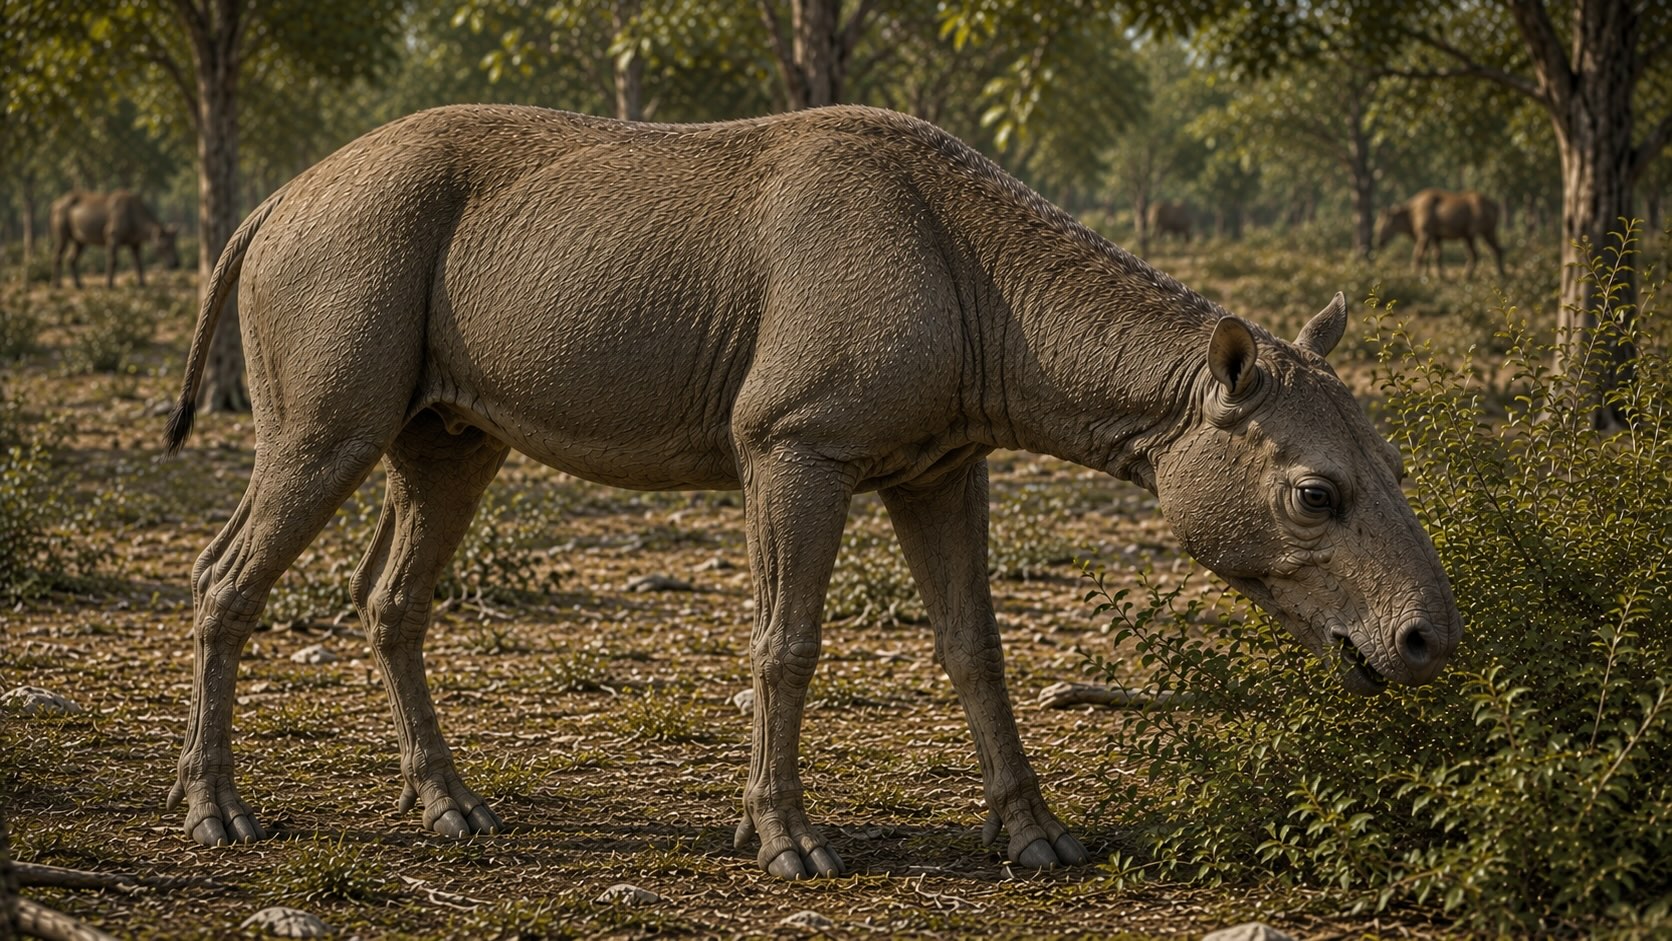
Subhyracodon oli varhainen, sarveton sarvikuono, joka laidunsi tasankojen reunamilla. Se oli Paraceratheriumin pienempi ja tavanomaisempi sukulainen ja edusti sitä sarvikuonojen päähaaraa, josta nykyiset sarvelliset sarvikuonot kehittyivät. Oligoseenilla sarvikuonot olivat monimuotoisia ja yleisiä — kaukana nykyisestä muutamasta uhanalaisesta lajista.
Sarvikuonojen sukuhaara oli oligoseenilla yksi menestyneimmistä kasvinsyöjäryhmistä. Sen kirjo ulottui pienestä Subhyracodonista aina jättimäiseen Paraceratheriumiin asti, ja väliltä löytyi monenlaisia muotoja: virtahepomaisia vesisarvikuonoja, hoikkia juoksijoita ja tanakoita laiduntajia. Useimmilla varhaisilla sarvikuonoilla ei ollut vielä sarvea lainkaan — nykyisten sarvikuonojen tunnusomainen sarvi kehittyi vasta myöhemmin. Subhyracodon edustaa tätä varhaista, sarvetonta vaihetta, joka oli kuitenkin jo tunnistettavasti sarvikuono. Nykyään ryhmä on kutistunut vain viiteen uhanalaiseen lajiin, mutta oligoseenilla se oli tasankojen ja metsien yleinen, monimuotoinen asukas.
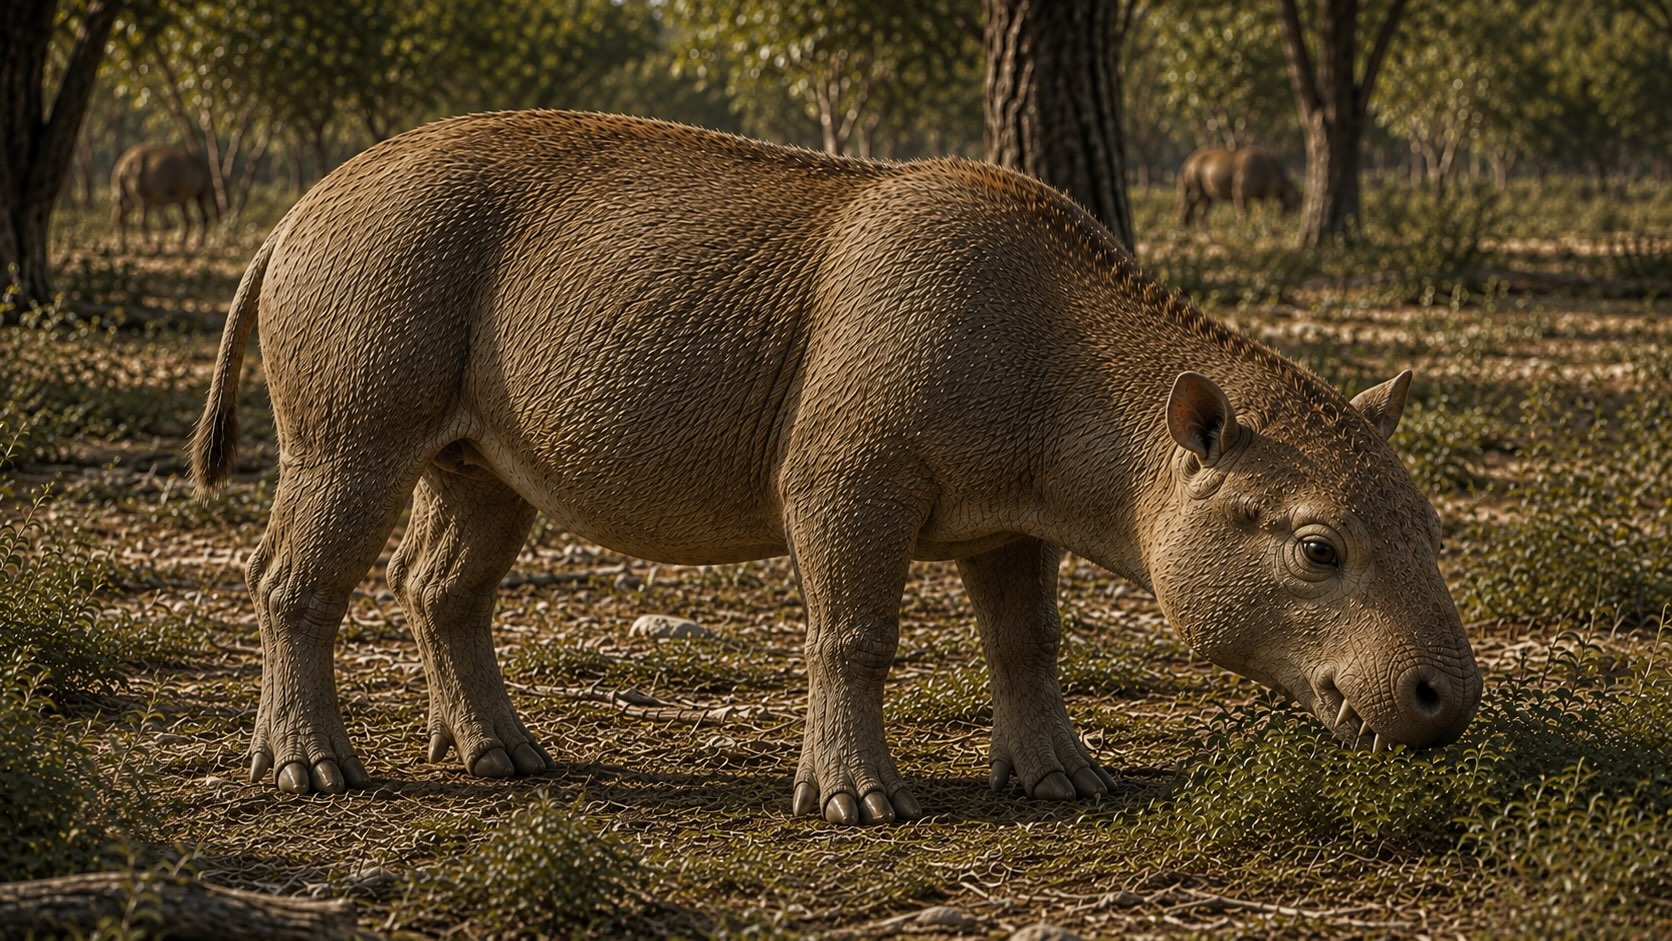
Kaikkein tyypillisin oligoseenin tasankoeläin oli kuitenkin oreodontti. Merycoidodon oli lampaan kokoinen kasvinsyöjä, joka eli valtavina laumoina — sen fossiileja on löydetty White River Badlandsista niin runsaasti, että se oli aikansa yleisimpiä nisäkkäitä. Oreodontit olivat pelkästään Pohjois-Amerikassa eläneitä sorkkaeläimiä, joilla ei ole nykyistä vastinetta: ne muistuttivat sekoitusta lampaasta, siasta ja kamelista. Nämä eläimet olivat oligoseenin tasankojen "antilooppeja" — runsaslukuinen saaliseläin, jonka varassa koko petojen maailma lepäsi.
Oreodontit ovat erinomainen esimerkki eläinryhmästä, joka oli aikanaan valtavan menestynyt mutta joka on nykyään täysin unohtunut. Niitä oli kymmeniä lajeja pienistä puolikkaan metrin mittaisista suurempiin, ja ne olivat monimuotoisia myös elintavoiltaan. Jotkut oreodontit elivät laumoissa tasangoilla, toiset olivat sopeutuneet kaivautuvaan tai jopa puoliksi vedessä elävään elämäntapaan. Niiden fossiileja on niin runsaasti, että ne kuuluvat White River Badlandsin yleisimpiin löytöihin. Silti oreodontit kuolivat lopulta kokonaan sukupuuttoon myöhemmillä aikakausilla jättämättä yhtään jälkeläistä — muistutus siitä, että jopa aikansa runsain eläin voi kadota jäljettömiin.
Yhdessä nämä eläimet muodostivat aivan uudenlaisen ekosysteemin. Eoseenin metsissä eläimet olivat eläneet hajallaan, piiloutuen tiheikköön, mutta oligoseenin avoimilla tasangoilla ne alkoivat elää laumoissa. Lauma tarjosi turvaa: monta silmäparia havaitsi pedon kaukaa, ja hajaantuva lauma hämäsi saalistajaa. Tämä on sama strategia, jota nykyiset tasankojen laumaeläimet — gnut, seeprat ja antiloopit — käyttävät edelleen. Oligoseenin tasangoilla syntyi siis se peruskuvio, joka määrittää nykyisiä savanneja: suuret kasvinsyöjälaumat, jotka laiduntavat avoimessa maastossa nopeiden petojen valppaan katseen alla.
Oudot jättiläiset ja Afrikan arkki
Samaan aikaan kun Pohjois-Amerikan tasangoilla kehittyi moderni kavioeläinfauna, Afrikka oli oma, muusta maailmasta eristynyt mantereensa, jolla kehittyi aivan omanlaisensa eläimistö. Egyptin Fayumin alue on tämän maailman tärkein ikkuna — sieltä tunnetaan varhaisia norsuja, kädellisiä ja outoja jättiläisiä, joita ei tavata mistään muualta.
Afrikka oli suuren osan kenotsooista aikaa saarimanner, joka oli erillään Euraasiasta. Tämä eristyneisyys teki siitä evoluution keskuksen, jossa syntyi kokonaisia eläinryhmiä muusta maailmasta riippumatta. Fayumin kosteikot ja rannikkometsät tarjosivat rehevän elinympäristön, ja niiden fossiilit paljastavat maailman, joka poikkesi täysin Pohjois-Amerikan tasangoista. Täällä kehittyivät norsut, merilehmät ja monet muut ryhmät, joiden merkitys ulottuu aina nykyiseen luontoon asti.

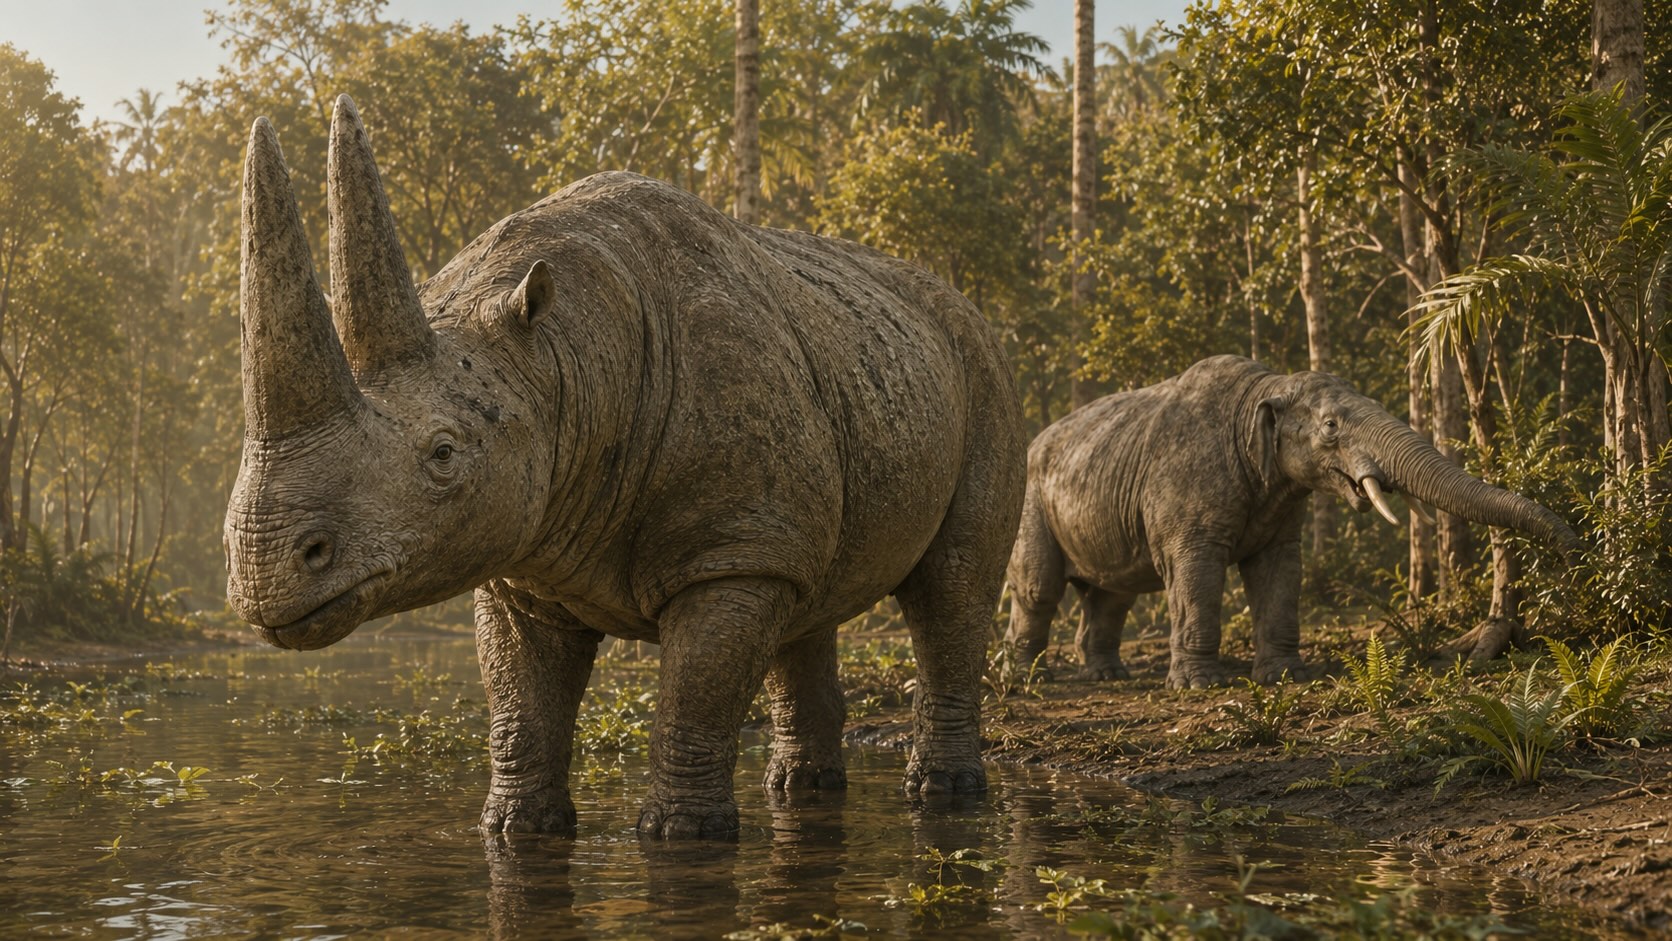
Arsinoitherium oli sarvikuonon kokoinen kasvinsyöjä, jonka kuonolla oli kaksi valtavaa, rinnakkaista sarvea. Vaikka se muistutti sarvikuonoa, se ei ollut sille sukua lainkaan — se kuului omaan, sittemmin sukupuuttoon kuolleeseen lahkoonsa (embrithopodit) ja oli itse asiassa kaukaista sukua norsuille ja merilehmille. Arsinoitheriumin valtavat sarvet olivat luuta ja ontot sisältä, ja ne olivat todennäköisesti sekä näyttöeliminä että aseina. Se on yksi oligoseenin omalaatuisimmista eläimistä.
Arsinoitheriumin sukulaisuussuhteet ovat hämmästyttävä esimerkki siitä, kuinka pettävä ulkonäkö voi olla. Vaikka se näytti sarvikuonolta, se ei ollut sukua sarvikuonoille eikä millekään muullekaan kavioeläimelle. Sen lähimmät sukulaiset olivat norsut ja merilehmät — ryhmä, joka sai alkunsa Afrikassa. Arsinoitheriumin kaksi valtavaa sarvea kohosivat suoraan kuonon päältä, ja niiden vieressä oli vielä toinen, pienempi sarvipari. Eläin eli todennäköisesti kosteikoissa ja rantametsissä, joissa se söi pehmeitä kasveja. Se on täydellinen esimerkki Afrikan eristyneen mantereen omalaatuisesta eläimistöstä — muoto, joka kehittyi kerran eikä koskaan toistunut.
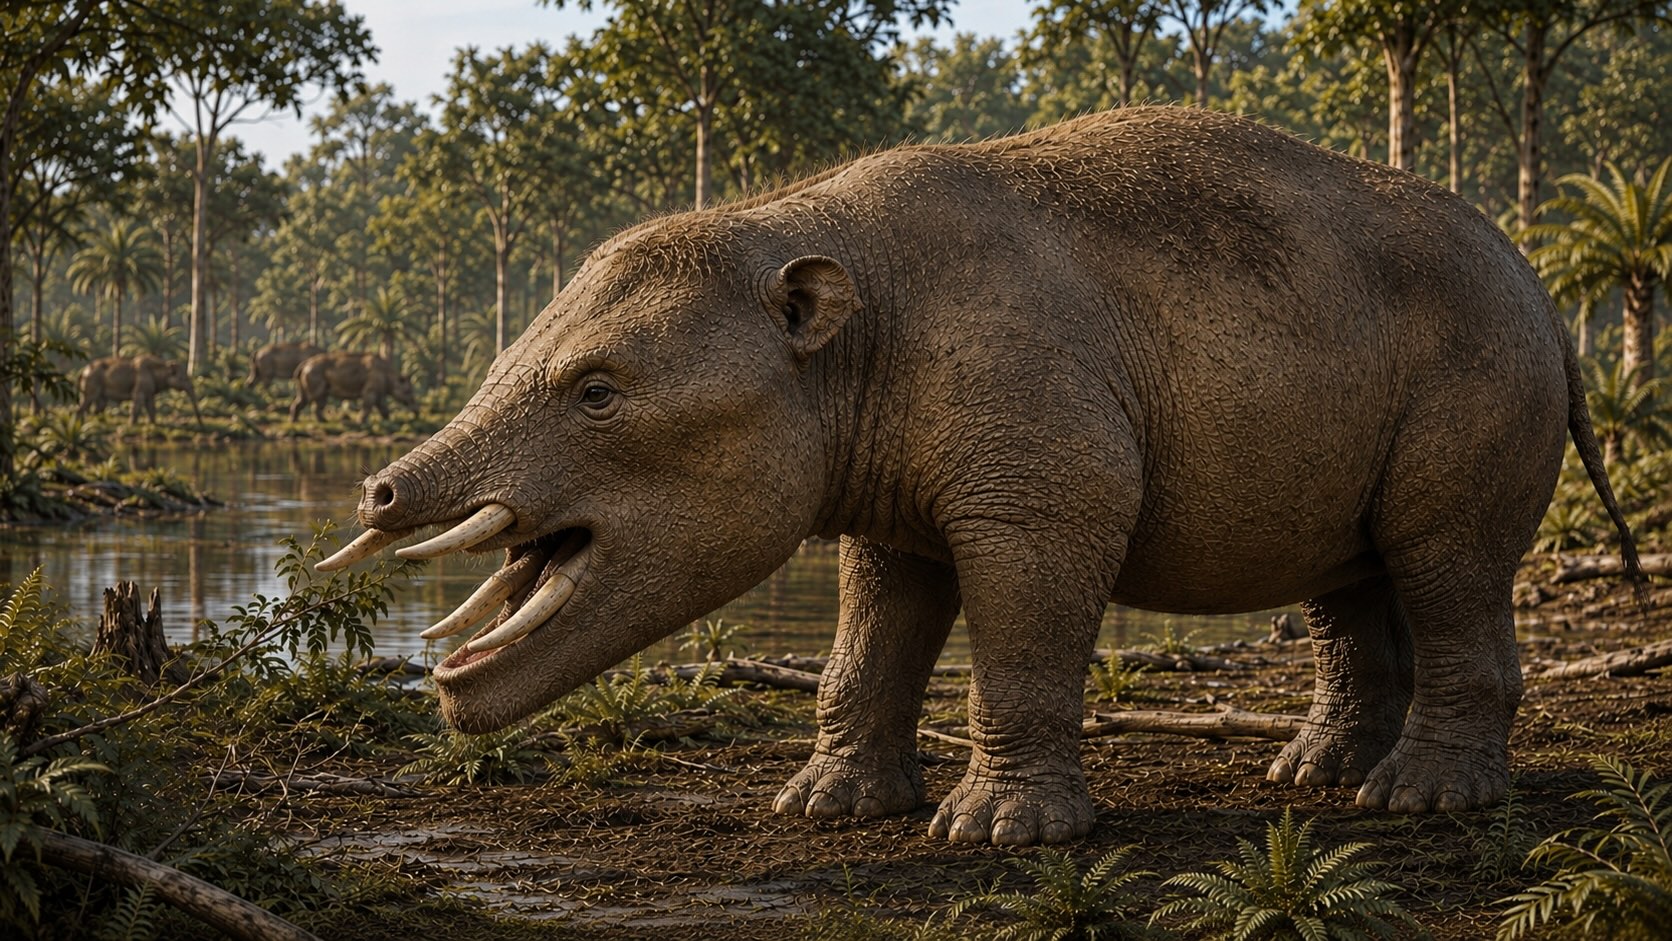
Fayumista tunnetaan myös ensimmäisiä varsinaisia norsuja. Palaeomastodon ja sen sukulainen Phiomia olivat jo tunnistettavia kärsäkkäitä: niillä oli lyhyt kärsä ja syöksyhampaat, vaikka ne olivat nykyisiä norsuja pienempiä. Ne edustavat askelta eoseenin tapiirimaisesta Moeritheriumista kohti myöhempien aikakausien mastodontteja ja mammutteja. Afrikka toimi näiden ryhmien "arkkina" — kun se myöhemmin liittyi Euraasiaan, norsut levisivät sieltä ympäri maailmaa.
Norsujen evoluutio Fayumissa kuvaa kauniisti, kuinka eläinryhmä kehittyy vaiheittain. Eoseenin Moeritherium oli ollut tapiirimainen puolivesieläin ilman kärsää, kun taas oligoseenin Palaeomastodonilla oli jo lyhyt kärsä ja syöksyhampaat sekä ala- että yläleuassa. Kärsä ja syöksyhampaat kehittyivät, koska eläinten koko kasvoi: mitä suurempi pää, sitä vaikeampi ylettää maahan asti syömään, joten pitenevä kärsä oli ratkaisu ravinnon poimimiseen. Näistä varhaisista kärsäkkäistä kehittyivät myöhemmin mastodontit, mammutit ja lopulta nykyiset afrikan- ja aasiannorsut. Fayumin fossiilit ovat siis avainikkuna yhden maailman vaikuttavimman eläinryhmän syntyyn.
Eristyneisyys tuotti omalaatuisia eläimiä muuallakin. Etelä-Amerikka oli oligoseenilla erillinen saarimanner, jolla kehittyi kokonaan omia nisäkäslinjoja: norsumaisia pyrotheerejä, sekä notoungulaatteja ja litopternejä — kavioeläinten kaltaisia ryhmiä, jotka eivät olleet sukua muun maailman kavioeläimille vaan kehittyivät samankaltaisiksi itsenäisesti. Nämä eläimet ovat loistava esimerkki siitä, kuinka eristyneisyys synnyttää ainutlaatuista evoluutiota — samaan tapaan kuin Australian pussieläimet.
Australia oli oligoseenilla oma eristynyt maailmansa siinä missä Etelä-Amerikka ja Afrikkakin. Sen eläimistöä hallitsivat pussieläimet, jotka olivat kehittyneet täyttämään kaikki ekologiset roolit ilman kilpailua istukkanisäkkäiden kanssa: oli pussipetoja, pussimaisia kasvinsyöjiä ja kaikkea siltä väliltä. Kolme eristynyttä mannerta — Afrikka, Etelä-Amerikka ja Australia — kehittivät siis kukin oman, muusta maailmasta poikkeavan eläimistönsä. Tämä tekee oligoseenin maailmasta erityisen kiehtovan: se ei ollut yksi yhtenäinen eläimistö vaan joukko erillisiä, rinnakkain kehittyviä maailmoja, joista jokainen oli oma kokeilunsa siitä, mihin elämä pystyy.
Eristyneet mantereet ovat evoluution luonnollisia laboratorioita. Kun eläimet kehittyvät erillään muusta maailmasta miljoonien vuosien ajan, ne tuottavat muotoja, joita ei tavata missään muualla. Etelä-Amerikassa tämä johti kokonaisiin nisäkäslahkoihin, joilla ei ole nykyistä vastinetta, ja Afrikassa se tuotti norsujen, merilehmien ja kädellisten kaltaisia ryhmiä. Kun nämä eristyneet mantereet myöhemmin liittyivät muuhun maailmaan, seurasi suuria eläimistön mullistuksia: uudet tulokkaat ja vanhat asukkaat kohtasivat, kilpailivat ja monet vanhat linjat katosivat. Oligoseeni oli tämän suuren mannertenvälisen sekoittumisen aattoa — maailma oli vielä jakautunut erillisiin eläimistön saarekkeisiin, mutta niiden yhdistyminen oli jo alkamassa.
Huippupedot — helvetinsiat, valhesapelihampaat ja ensimmäiset kissat
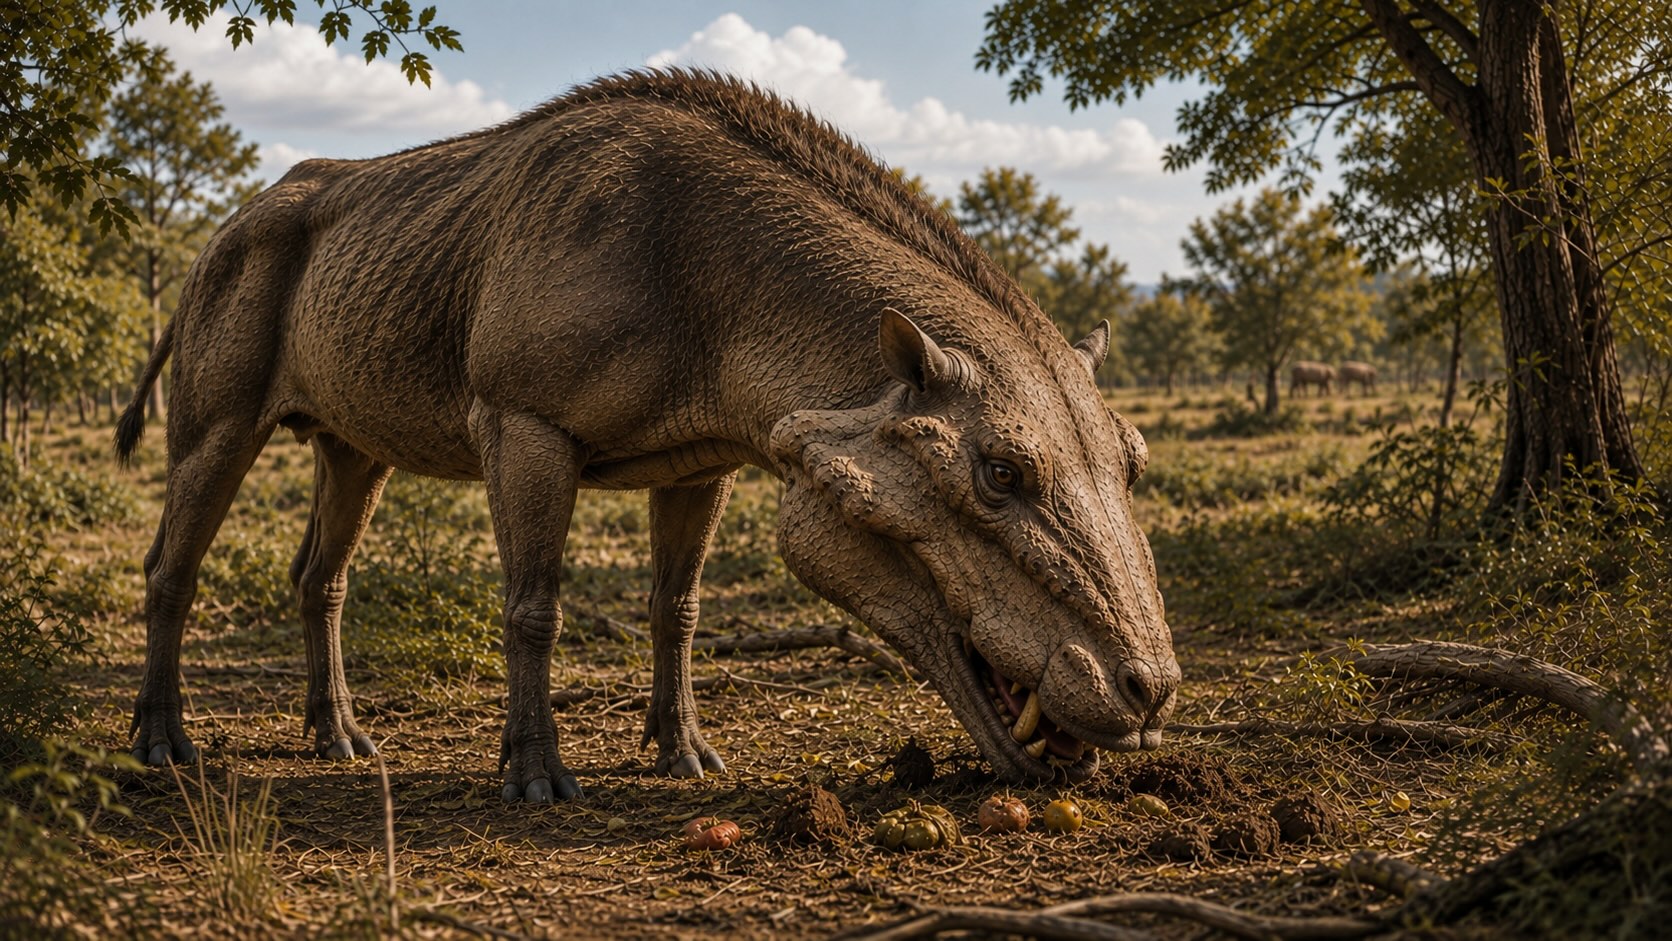
Oligoseenikauden tasangot olivat vaarallinen paikka. Ravintoketjun huipulla oli joukko petoja ja kaikkiruokaisia, joista monet olivat nykyihmiselle täysin vieraita.
Oligoseeni oli petojen kannalta murroskausi. Vanhat kreodontit, jotka olivat hallinneet eoseenia, olivat yhä läsnä mutta väistymässä. Samaan aikaan ilmestyivät ensimmäiset nykyisten petoeläinten edustajat sekä joukko omalaatuisia välimuotoja. Ravintoketjun huipulla vallitsi siis sekava, monimuotoinen joukko: helvetinsikoja, valhesapelihampaita ja ensimmäisiä aitoja kissoja ja koiria. Tämä kirjo kuvaa hyvin oligoseenia ylipäätään — aikakautta, jossa vanha ja uusi maailma elivät rinnakkain.
Entelodon, liikanimeltään "helvetinsika", oli yksi oligoseenin pelottavimmista eläimistä. Tämä lähes kaksimetrinen ja tonnin painoinen siansukulainen oli kaikkiruokainen jättiläinen, jolla oli massiiviset leuat ja kauhistuttava ulkonäkö. Entelodonin kallon sivuilla oli suuret luukyhmyt, jotka saattoivat toimia sekä lajintunnistuksena että aseina lajitovereiden kamppailuissa. Fossiileista on löydetty todiste siitä, että entelodonit purivat toisiaan päähän. Sen sukulainen Archaeotherium oli yhtä lailla pelätty tasankojen jättiläinen.
Entelodontit ovat hyvä muistutus siitä, ettei sukulaisuus kerro kaikkea eläimen luonteesta. Vaikka niitä kutsutaan "helvetinsioiksi", ne eivät olleet nykyisten sikojen esi-isiä vaan kaukainen, sittemmin sukupuuttoon kuollut sukuhaara. Niiden hampaisto ja luusto viittaavat siihen, että ne olivat todellisia kaikkiruokaisia — ne söivät kasveja, raatoja ja todennäköisesti myös saalistivat tai varastivat saaliin muilta pedoilta. Fossiiliaineistosta on löydetty jopa todisteita siitä, että entelodontit kätkivät saalista myöhempää käyttöä varten, aivan kuten jotkut nykypedot. Massiivinen pää, järeät leuat ja pelottavat kulmahampaat tekivät niistä oligoseenin tasankojen kiistattomia jättiläisiä, joita muut eläimet varmasti väistivät.
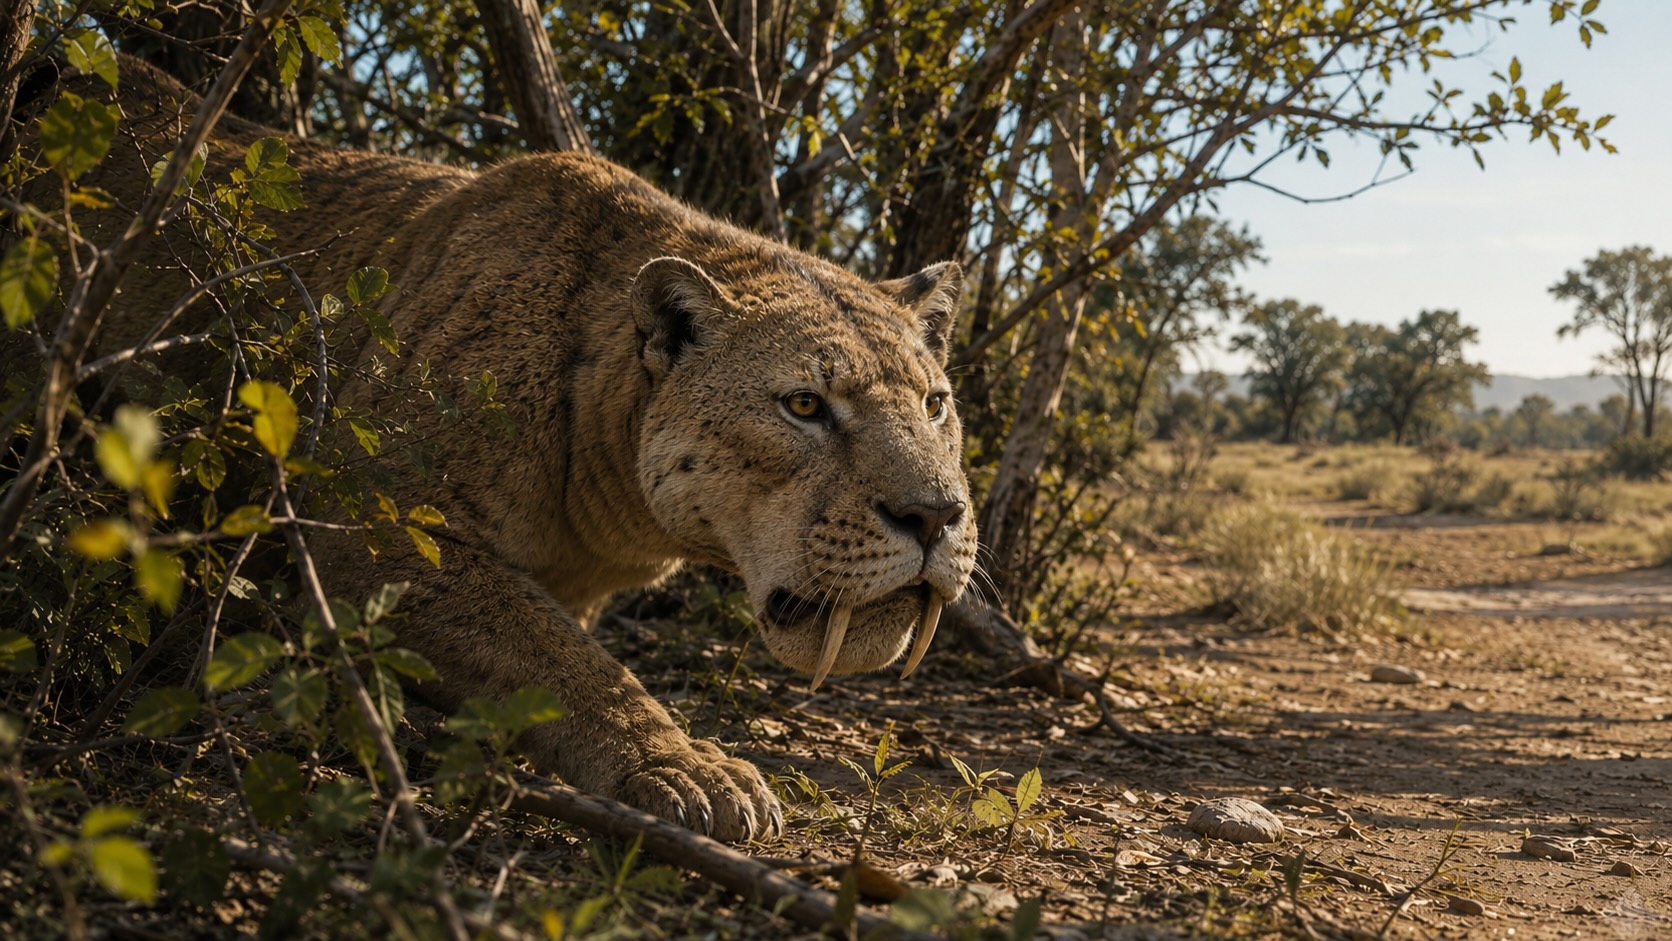
Oligoseenissa ilmestyivät myös ensimmäiset nimravidit — eläimet, jotka näyttivät hämmästyttävästi sapelihammaskissoilta mutta eivät olleet aitoja kissaeläimiä. Hoplophoneus oli näistä tunnetuimpia: leopardin kokoinen peto pitkine kulmahampaineen. Sillä oli tanakka, lihaksikas ruumis, voimakkaat etujalat saaliin painimiseen ja pitkät, tikarimaiset kulmahampaat, joilla se saattoi iskeä syvän haavan saaliiseen — silti se ei kuulunut kissaeläimiin lainkaan. Nimravidit ovat yksi luonnon parhaista esimerkeistä konvergentista evoluutiosta — kaksi eri sukuista ryhmää kehittyi samaan muotoon, koska samanlainen elinympäristö suosii samanlaisia ratkaisuja. Aidot sapelihammaskissat kehittyisivät paljon myöhemmin täysin erikseen.
Nimravidit ovat yksi luonnon hienoimmista esimerkeistä siitä, kuinka sama muoto kehittyy uudelleen ja uudelleen. Sapelihammaspeto — pitkine tikarimaisine kulmahampaineen — on syntynyt evoluutiossa itsenäisesti useita kertoja: eoseenin kreodonteilla (Machaeroides), oligoseenin nimravideilla (Hoplophoneus), myöhempien aikojen aidoilla sapelihammaskissoilla ja jopa Etelä-Amerikan pussipedoilla. Aina kun jokin peto erikoistuu suurten, paksunahkaisten saaliseläinten tappamiseen, sama ratkaisu näyttää löytyvän: pitkät kulmahampaat, joilla saaliiseen voi iskeä syvän, tappavan haavan. Hoplophoneus ei siis ollut kissa, mutta se eli kuin kissa ja näytti kissalta — todiste siitä, että elinympäristö muovaa eläimiä voimakkaammin kuin niiden sukuperä.
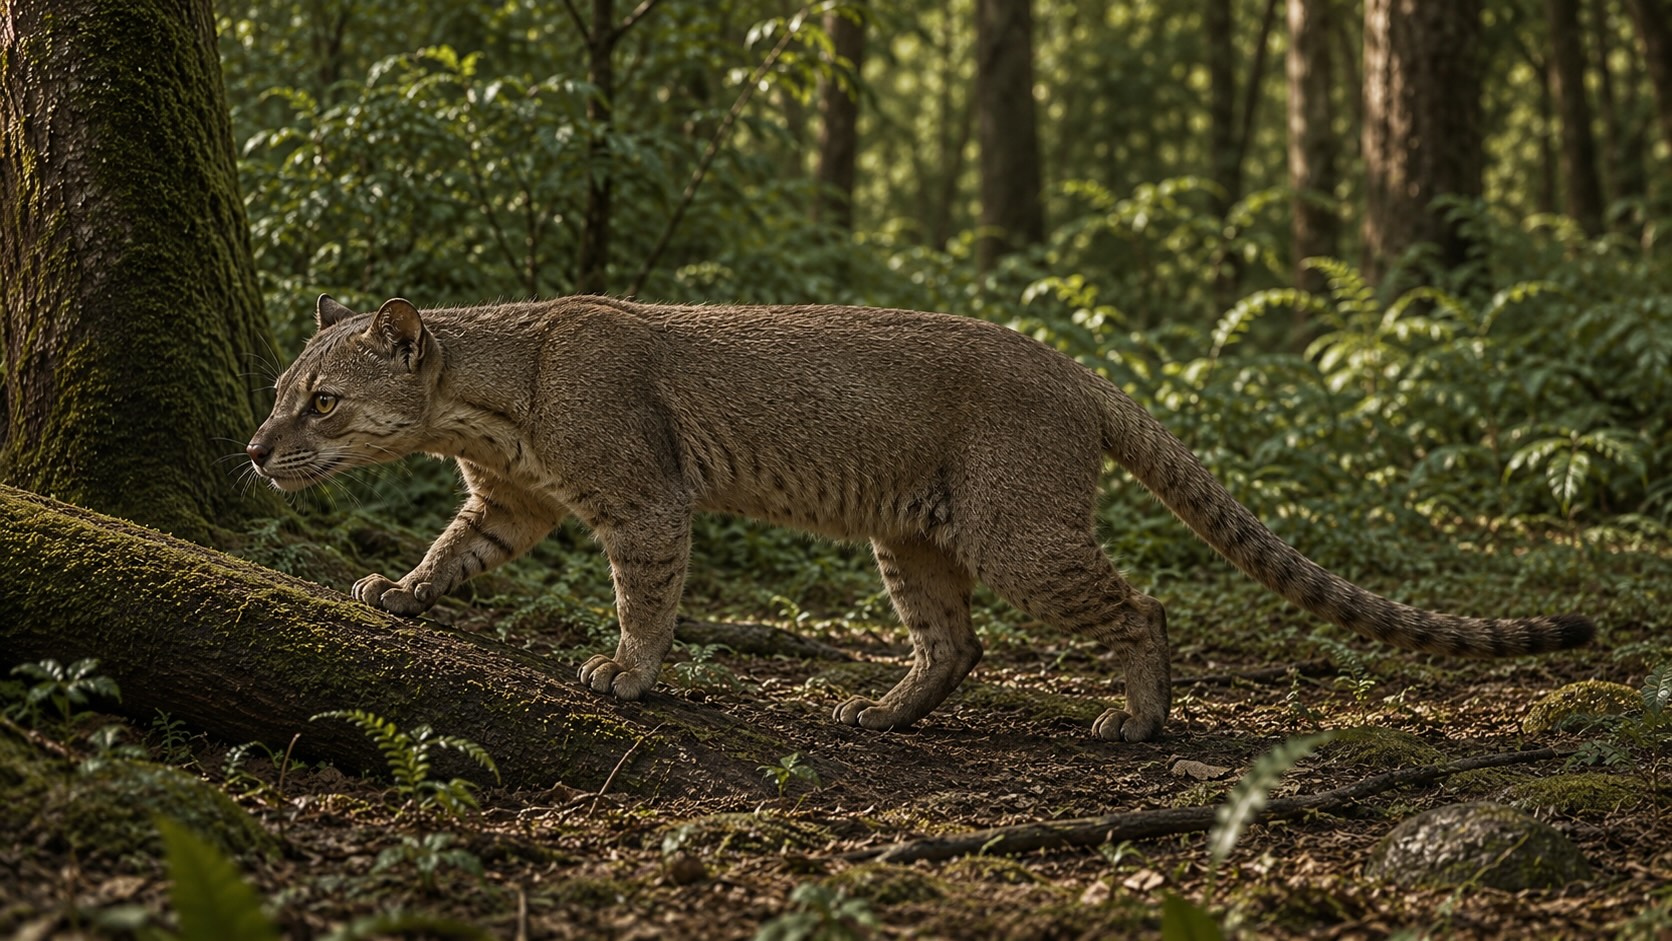
Samaan aikaan ilmestyivät myös ensimmäiset aidot kissa- ja koiraeläimet. Proailurus ("varhainen kissa") oli ensimmäinen aito kissaeläin — pieni, puissa elävä saalistaja, josta polveutuvat kaikki nykyiset kissat leijonista kotikissoihin.
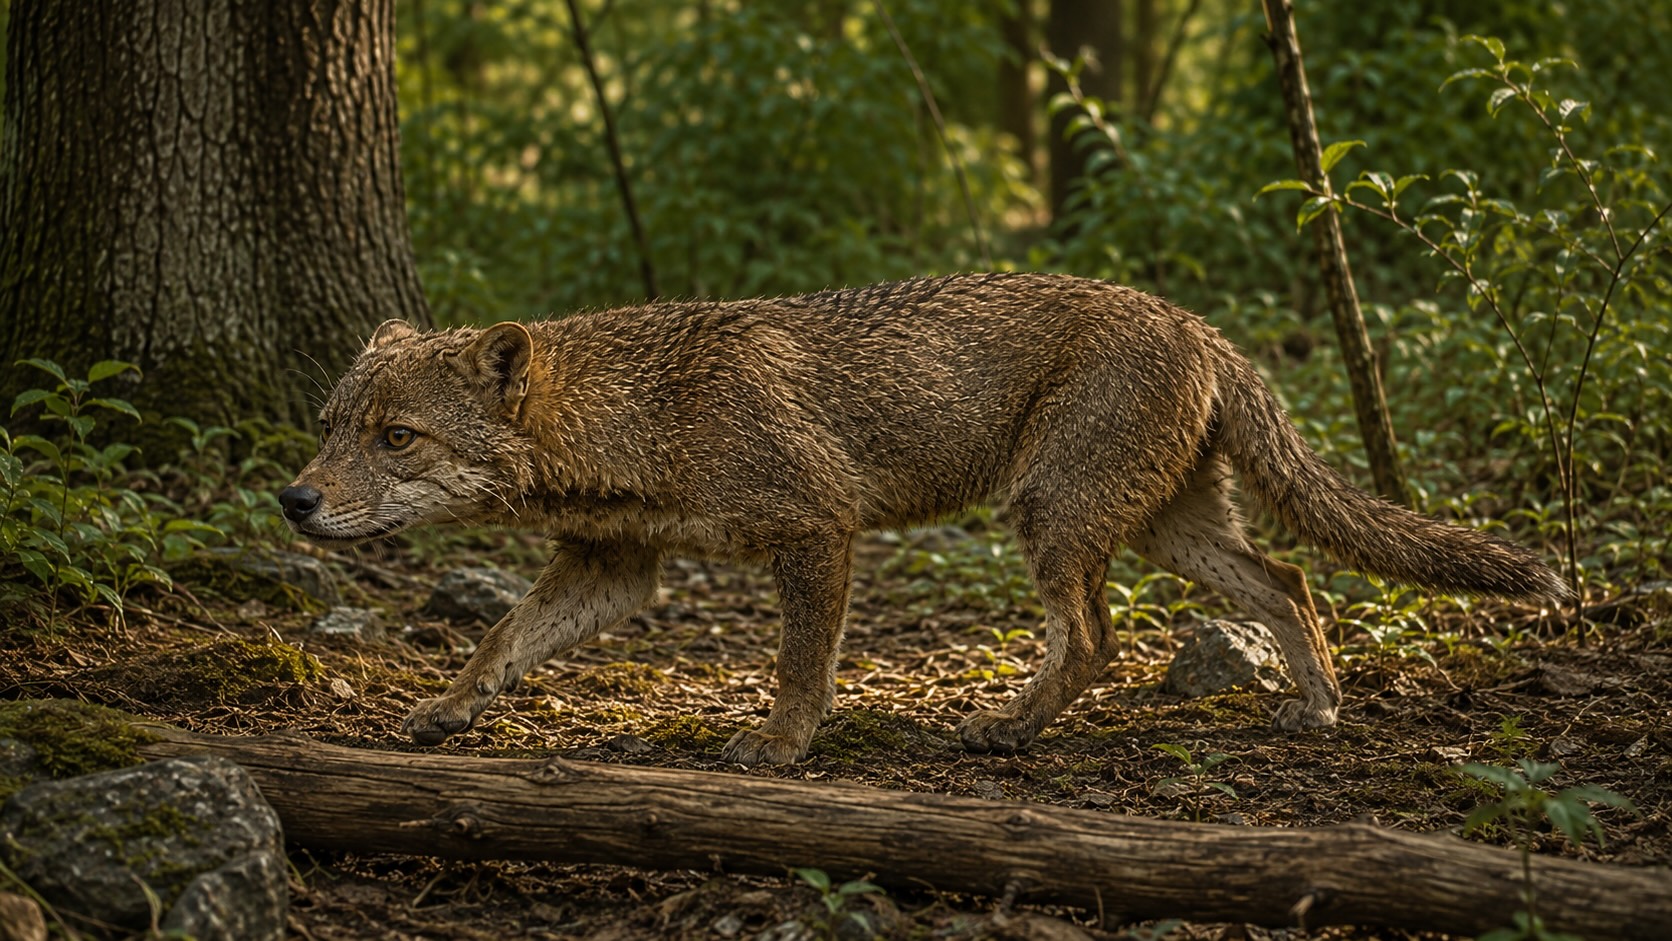
Hesperocyon puolestaan oli ketun kokoinen koiraeläinten esi-isä, joka eli Pohjois-Amerikan metsien laidoilla. Näistä pienistä, vaatimattomista pedoista kehittyisivät lopulta kaikki nykyiset kissat, koirat, sudet ja ketut. On kiehtovaa ajatella, että jokainen nykyinen kotikissa ja koira polveutuu näistä oligoseenin pikkupedoista, jotka eivät vielä olleet ravintoketjun huipulla vaan pyydystivät jyrsijöitä ja liskoja entelodonttien ja nimravidien varjossa — mutta joiden sopeutuvuus osoittautui pitkällä aikavälillä voitokkaammaksi kuin aikansa mahtavien petojen. Oligoseeni oli siis nykyisten petoeläinten synnyinaika — samalla kun vanhat kreodontit olivat väistymässä.
Ero näiden ensimmäisten kissojen ja koirien sekä niitä edeltäneiden kreodonttien välillä oli ratkaiseva. Kreodonttien hampaisto oli tehokas mutta jäykkä, kun taas uusilla petoeläimillä oli joustavampi, monipuolisempi hampaisto ja usein suuremmat aivot. Tämä teki niistä sopeutuvaisempia ja älykkäämpiä saalistajia. Proailurus oli vielä pieni ja puissa elävä, mutta siitä kehittyisi koko kissaeläinten suku — myöhemmät nopeat maasaalistajat, sapelihammaskissat ja lopulta nykyiset suurkissat. Hesperocyon puolestaan aloitti koiraeläinten menestystarinan, joka johtaisi susiin, kettuihin ja lopulta koiraan, ihmisen vanhimpaan kumppaniin. Näin oligoseenin vaatimattomat pikkupedot olivat itse asiassa koko nykyisen petoeläinmaailman perustajia.
Tiesitkö — Miksi nisäkkäät eivät kasva dinosaurusten kokoisiksi?
Paraceratherium oli suurin maanisäkäs koskaan, mutta se painoi silti vain murto-osan suurimpien sauropodien massasta. Syy on fysiologiassa. Nisäkkäät ovat tasalämpöisiä, mikä vaatii valtavasti energiaa — suuri nisäkäs ylikuumenee helposti. Dinosaurusten ilmapussijärjestelmä kevensi luustoa ja tehosti hengitystä, ja muniminen mahdollisti nopean lisääntymisen ilman raskauden fyysisiä rajoitteita. Nisäkkäiden istukka ja imetys ovat tehokkaita mutta asettavat ylärajan sille, kuinka suuren jälkeläisen emo voi tuottaa.
Petolinnut — kauhulinnut ja niiden pohjoiset serkut
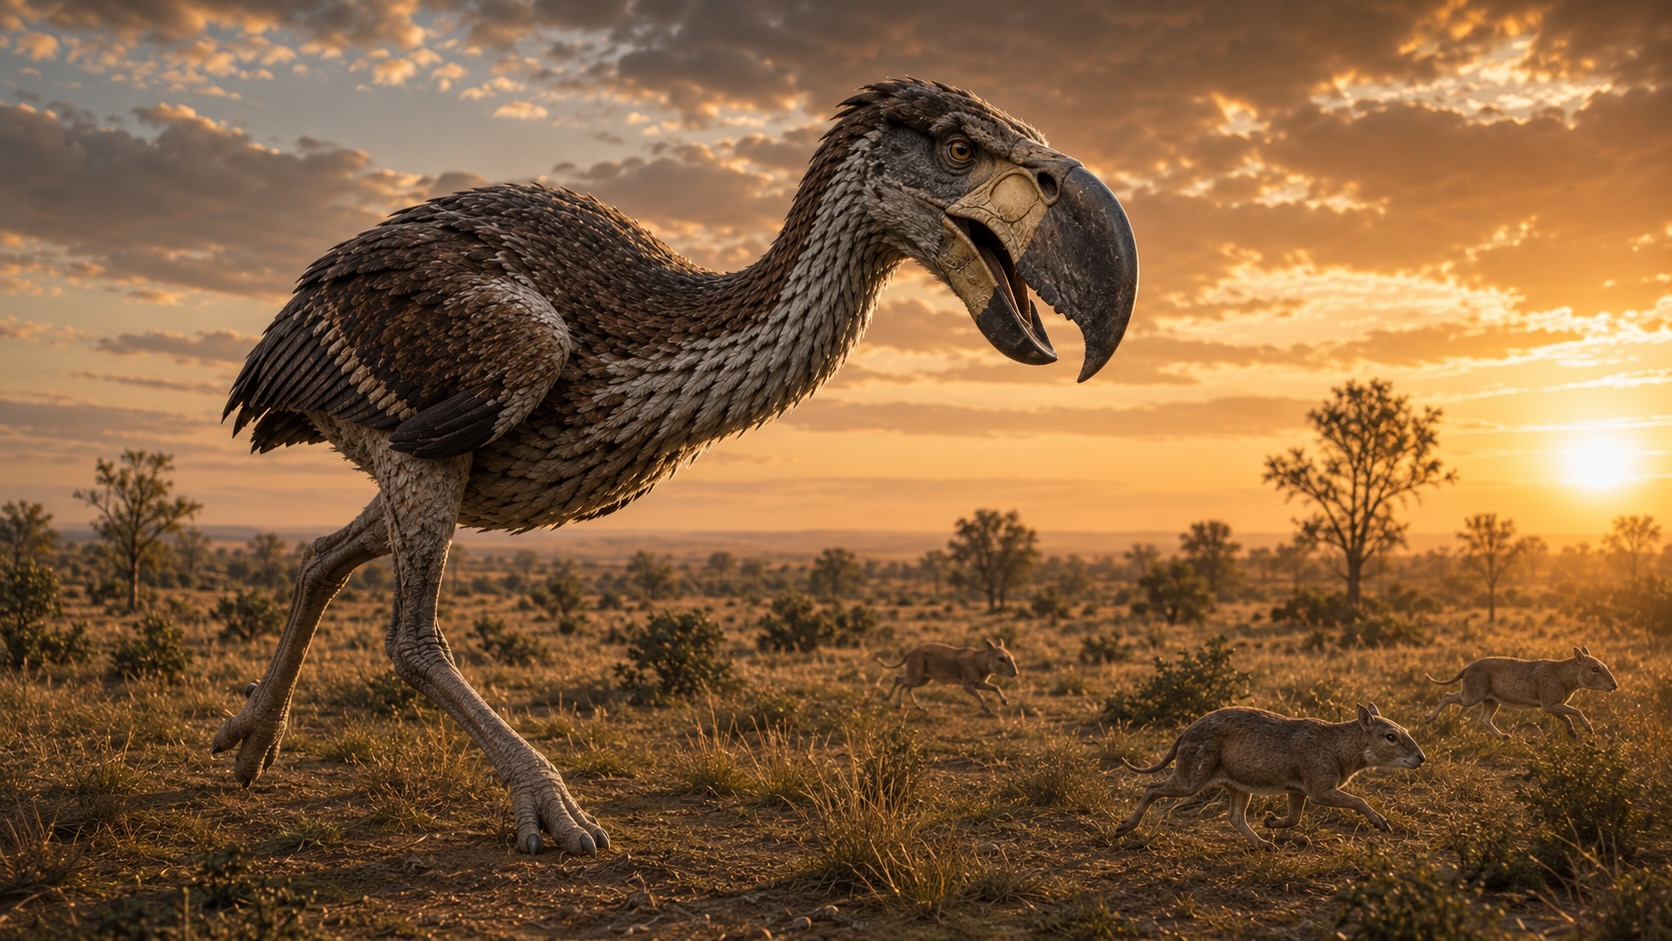
Vaikka nisäkkäät hallitsivat useimpia mantereita, yhdessä paikassa ravintoketjun huipulla olivat linnut. Eristyneessä Etelä-Amerikassa suuria nisäkäspetoja ei ollut, ja niiden tilalle nousivat kauhulinnut eli fororakidit — suuria, lentokyvyttömiä petolintuja, jotka jahtasivat saalistaan pitkillä jaloillaan ja tappoivat sen valtavalla, koukkumaisella nokallaan.
Petolinnut ansaitsevat oman lukunsa, koska ne edustavat kiehtovaa poikkeusta kenotsooisen ajan sääntöön. Lähes kaikkialla maapallolla nisäkkäät valtasivat suurten petojen roolin dinosaurusten jälkeen. Mutta siellä, missä olosuhteet olivat erilaiset — eristyneillä mantereilla ilman nisäkäspetoja — linnut nousivat takaisin huipulle. Kun aiemmilla sivuilla käsitelty Gastornis oli osoittautunut kasvissyöjäksi, oligoseenin kauhulinnut olivat aitoja huippupetoja, ja ne muistuttavat, etteivät dinosaurusten perilliset koskaan täysin luopuneet vallasta.
On tärkeää huomata, ettei aiemmilla sivuilla esitelty Gastornis ollut peto, vaan nykytutkimuksen mukaan kasvissyöjä. Kauhulinnut olivat sen sijaan todellisia huippupetoja — Etelä-Amerikan "tyrannosauruksia", jotka hallitsivat mannerta miljoonien vuosien ajan.
Kauhulintujen ase oli niiden valtava nokka. Se oli korkea, sivuiltaan litteä ja päättyi terävään koukkuun, ja sillä lintu saattoi lyödä ja repiä saalistaan tappavalla voimalla. Suurimmat kauhulinnut olivat jopa kolmimetrisiä, ja ne pystyivät todennäköisesti tappamaan saaliinsa iskemällä nokkansa siihen ylhäältä alaspäin kuin hakku. Niiden voimakkaat jalat tekivät niistä nopeita juoksijoita, jotka saattoivat ottaa saaliinsa kiinni avoimella tasangolla. Vaikka ne olivat lentokyvyttömiä, ne olivat kaikkea muuta kuin avuttomia — ne olivat mantereensa pelätyimpiä saalistajia.

Andrewsornis oli oligoseenin Argentiinassa elänyt kauhulintu, järeä ja voimakas saalistaja. Sen rinnalla eli pienempiä ja ketterämpiä lajeja, kuten Psilopterus, joka oli nopea juoksija ja saalisti pienempää riistaa.
Kauhulintujen kirjo osoittaa, että ne olivat monipuolinen ja menestynyt ryhmä eikä vain muutama jättiläinen. Suurimmat lajit olivat järeitä huippupetoja, jotka kaatoivat suurta saalista, kun taas pienemmät, kuten Psilopterus, olivat nopeita ja ketteriä ja jahtasivat pikkueläimiä. Tämä työnjako muistuttaa nykyisiä petolintuja ja -nisäkkäitä, joissa eri lajit ovat erikoistuneet erikokoiseen saaliiseen. Kauhulinnut säilyivät Etelä-Amerikassa hämmästyttävän pitkään — jotkut lajit elivät vielä muutama miljoona vuotta sitten — mikä tekee niistä yhden pitkäikäisimmistä huippupetojen ryhmistä koko kenotsooisella ajalla.
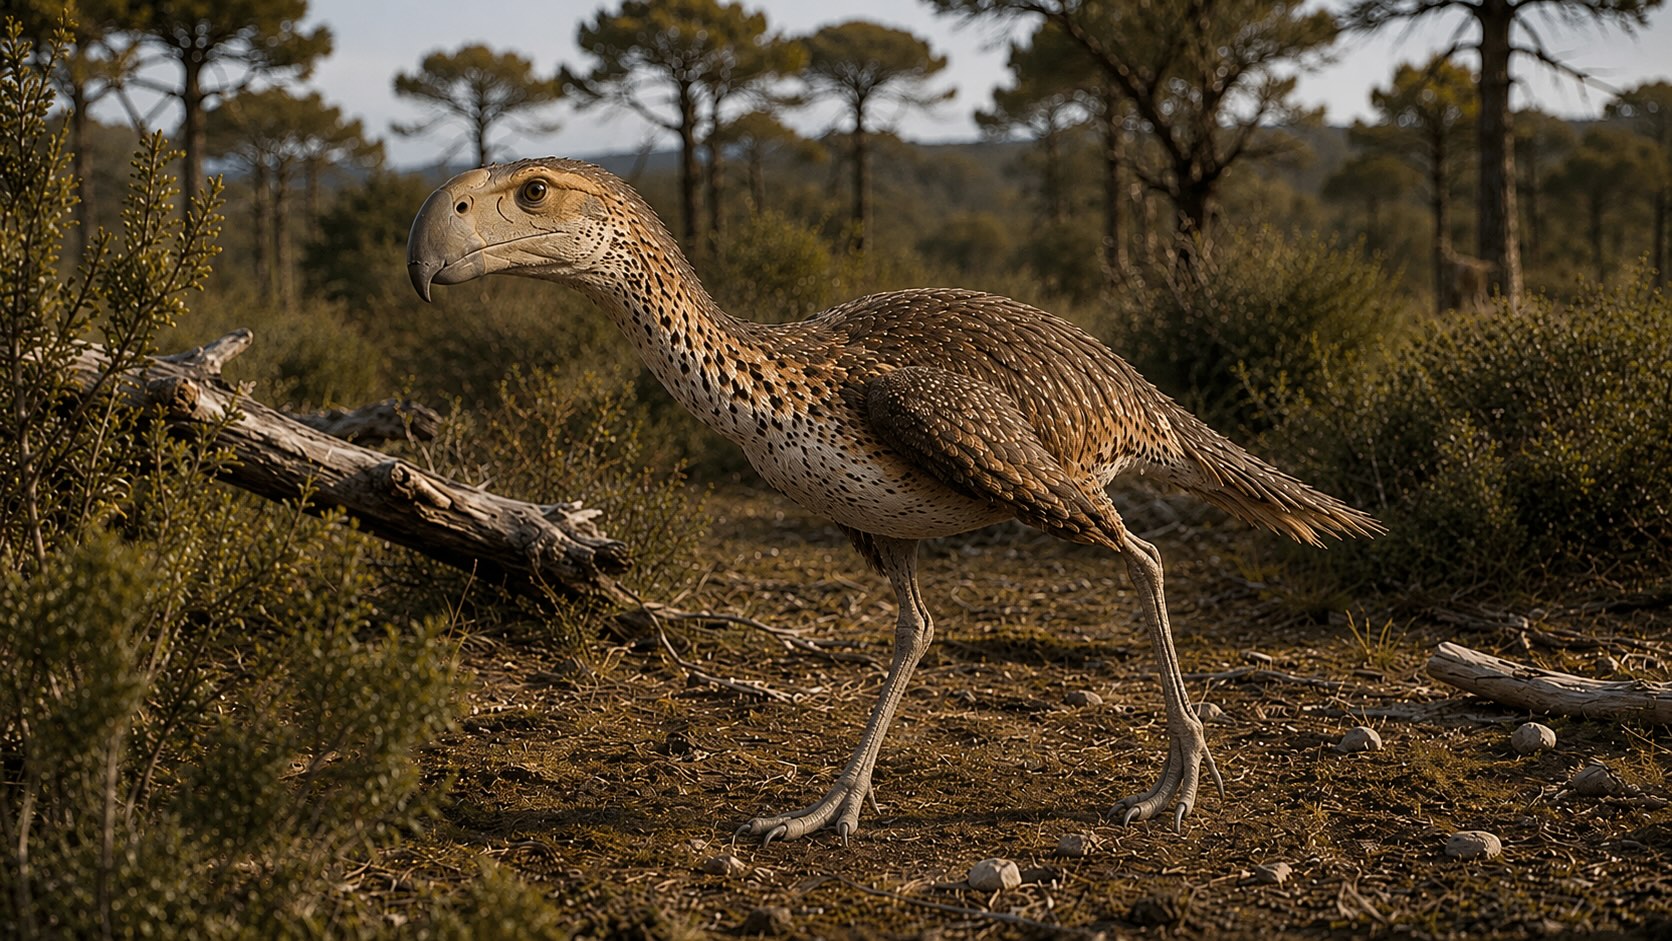
Kauhulinnut olivat niin menestyneitä, että ne hallitsivat Etelä-Amerikkaa aina siihen asti, kunnes manner yhdistyi Pohjois-Amerikkaan ja nisäkäspedot pääsivät leviämään etelään. Ne ovat vaikuttavin esimerkki siitä, kuinka linnut — dinosaurusten perilliset — pystyivät nousemaan huippupedoiksi aina, kun suuret nisäkäspedot puuttuivat.
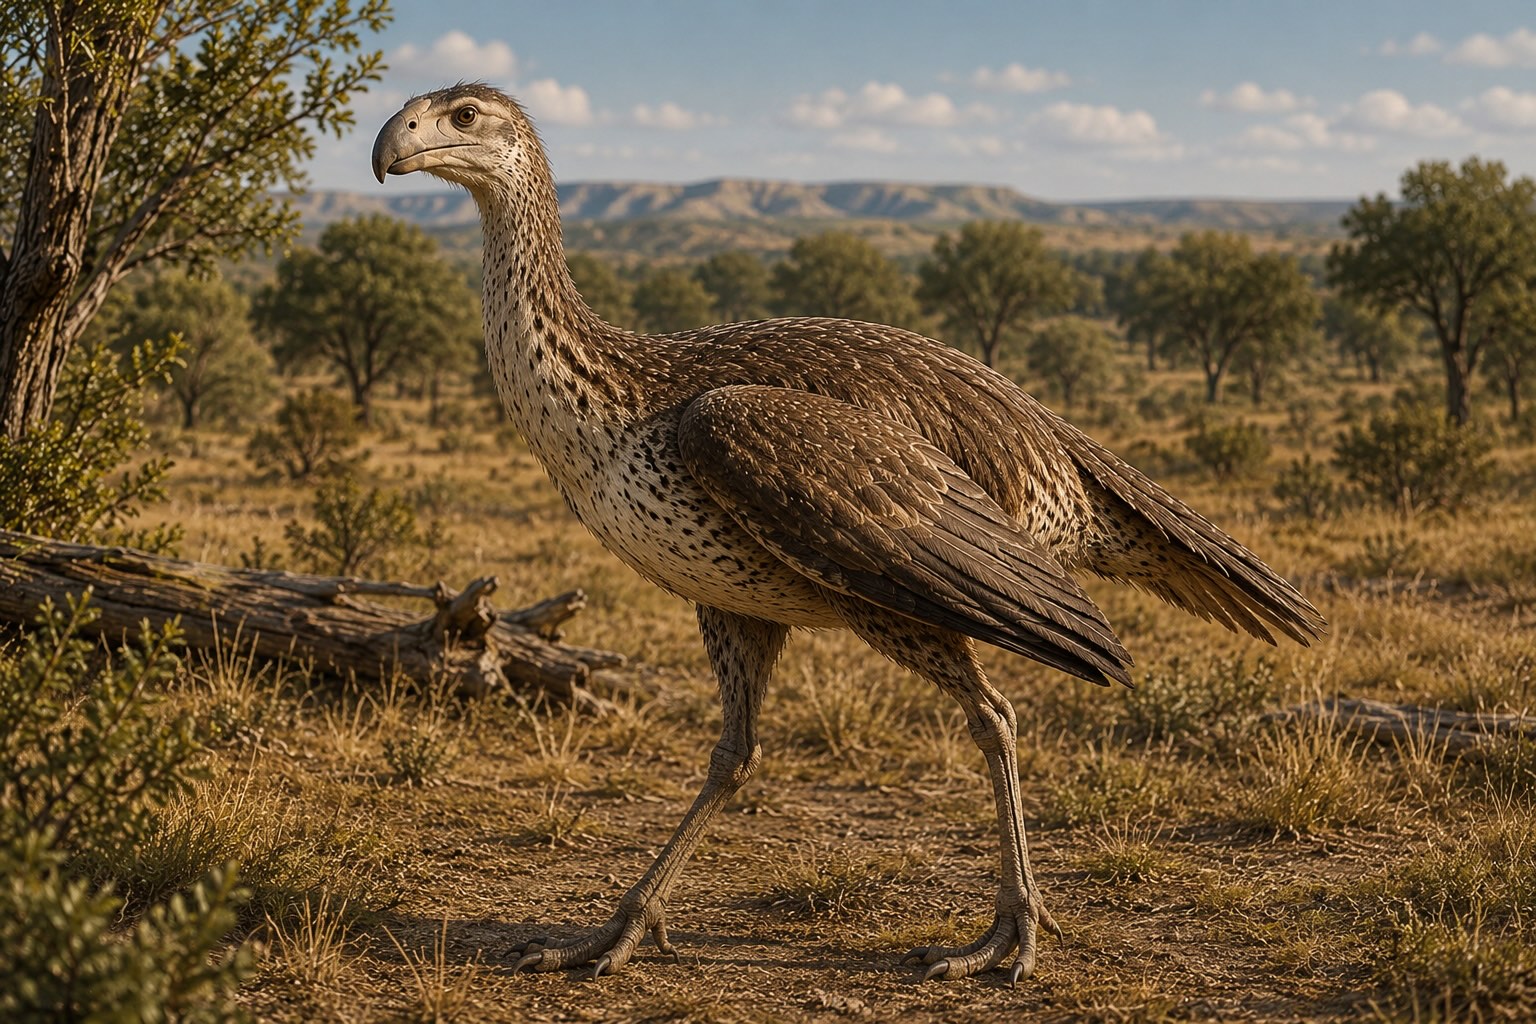
Pohjois-Amerikassa saman ekologisen roolin täyttivät kauhulintujen kaukaiset serkut, bathornithidit. Paracrax oli näistä suurimpia — suurten kauhulintujen kokoinen petolintu — kun taas Bathornis oli pienempi mutta yhtä lailla tehokas maasaalistaja. Vaikka bathornithidit eivät olleet läheistä sukua eteläisille kauhulinnuille, ne kehittyivät hämmästyttävän samankaltaisiksi — jälleen yksi esimerkki konvergentista evoluutiosta.
Bathornithidit osoittavat, että petolinnun idea toimi muuallakin kuin Etelä-Amerikassa. Pohjois-Amerikassa oli kyllä nisäkäspetoja, mutta oligoseenin varhaisessa vaiheessa suuret, tehokkaat maapedot olivat vielä kehittymässä, ja se jätti tilaa myös lintupetoille. Paracrax ja Bathornis täyttivät tämän lokeron pitkine jalkoineen ja järeine nokkineen. Lopulta ne kuitenkin väistyivät, kun nisäkäspedot — kissat, koirat ja niiden sukulaiset — kehittyivät tehokkaammiksi ja monilukuisemmiksi pohjoisilla mantereilla. Etelä-Amerikassa kauhulinnut sen sijaan säilyivät paljon pidempään, koska siellä kilpailevia nisäkäspetoja ei ollut. Näin sama lintupedon muoto koki eri kohtalon eri mantereilla riippuen siitä, ketä muita petoja oli tarjolla.

Petolintujen tarina osoittaa, että vaikka nisäkkäät valtasivat useimmat maapallon petojen roolit, linnut säilyttivät kykynsä nousta huipulle sopivissa oloissa. Oligoseeni oli näiden vaikuttavien lintupetojen kulta-aikaa sekä Etelä- että Pohjois-Amerikassa.
Tiesitkö — Dinosaurusten valtakausi ei koskaan päättynyt kokonaan
Sanomme usein, että dinosaurusten aika päättyi 66 miljoonaa vuotta sitten — mutta se ei ole aivan totta. Linnut ovat dinosauruksia, ainoa haara, joka selvisi suuresta sukupuutosta. Ja kauhulinnuissa dinosaurusten petoperintö nousi vielä kerran ravintoketjun huipulle: kaksijalkaisia, nopeita, järeäleukaisia saalistajia, jotka hallitsivat kokonaista mannerta miljoonien vuosien ajan. Etelä-Amerikassa "dinosaurukset" olivat siis huippupetoja vielä kymmeniä miljoonia vuosia meteori-iskun jälkeen — ja pieniä höyhenpukuisia dinosauruksia lentää yhä ikkunasi ohi joka päivä.
Kauhulintujen valtakausi päättyi vasta paljon myöhemmin, kun Panaman kannas yhdisti Amerikan mantereet ja pohjoisen nisäkäspedot — kissat, koirat ja karhut — pääsivät leviämään etelään. Siihen asti nämä linnut olivat kiistattomia huippupetoja omalla mantereellaan, ja ne säilyivät hämmästyttävän pitkään: viimeiset kauhulinnut elivät vielä muutama miljoona vuotta sitten, samaan aikaan kun ihmisen esi-isät ottivat ensiaskeliaan Afrikassa.
Meret — valaanhetulan synty ja ensimmäiset hylkeet
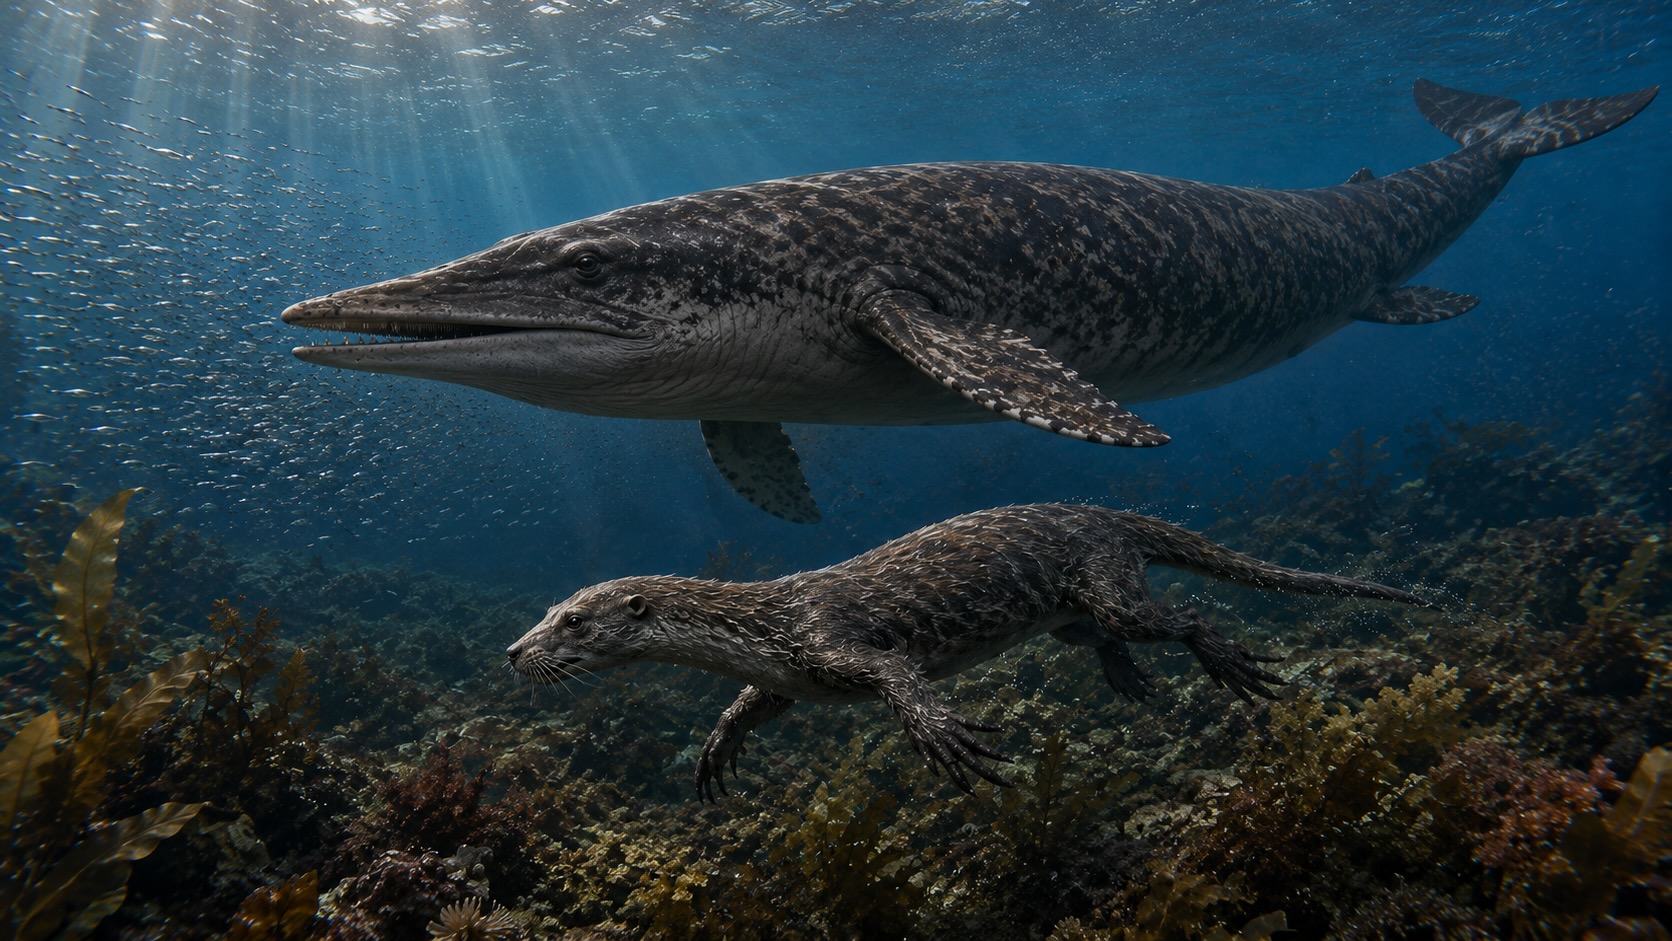
Myös meret modernisoituivat oligoseenilla. Viilenevät valtameret muuttuivat ravinteikkaammiksi, ja se loi olosuhteet aivan uudenlaisille merieläimille. Kaksi merkittävää muutosta tapahtui juuri tällä aikakaudella: valaanhetulan synty ja ensimmäisten hylkeiden ilmestyminen.
Meret olivat eoseenin lopun jäähtymisen jälkeen muuttuneet. Kylmenevä vesi kierrätti ravinteita tehokkaammin, ja se sai plankton- ja kalakannat kukoistamaan erityisesti napa-alueiden lähellä. Tämä ravintorunsaus loi tilaisuuden aivan uudenlaisille merieläimille, ja juuri se ajoi valaiden ja hylkeiden kehitystä oligoseenilla. Meret olivat siis muuttumassa moderneiksi samaan tapaan kuin maakin.
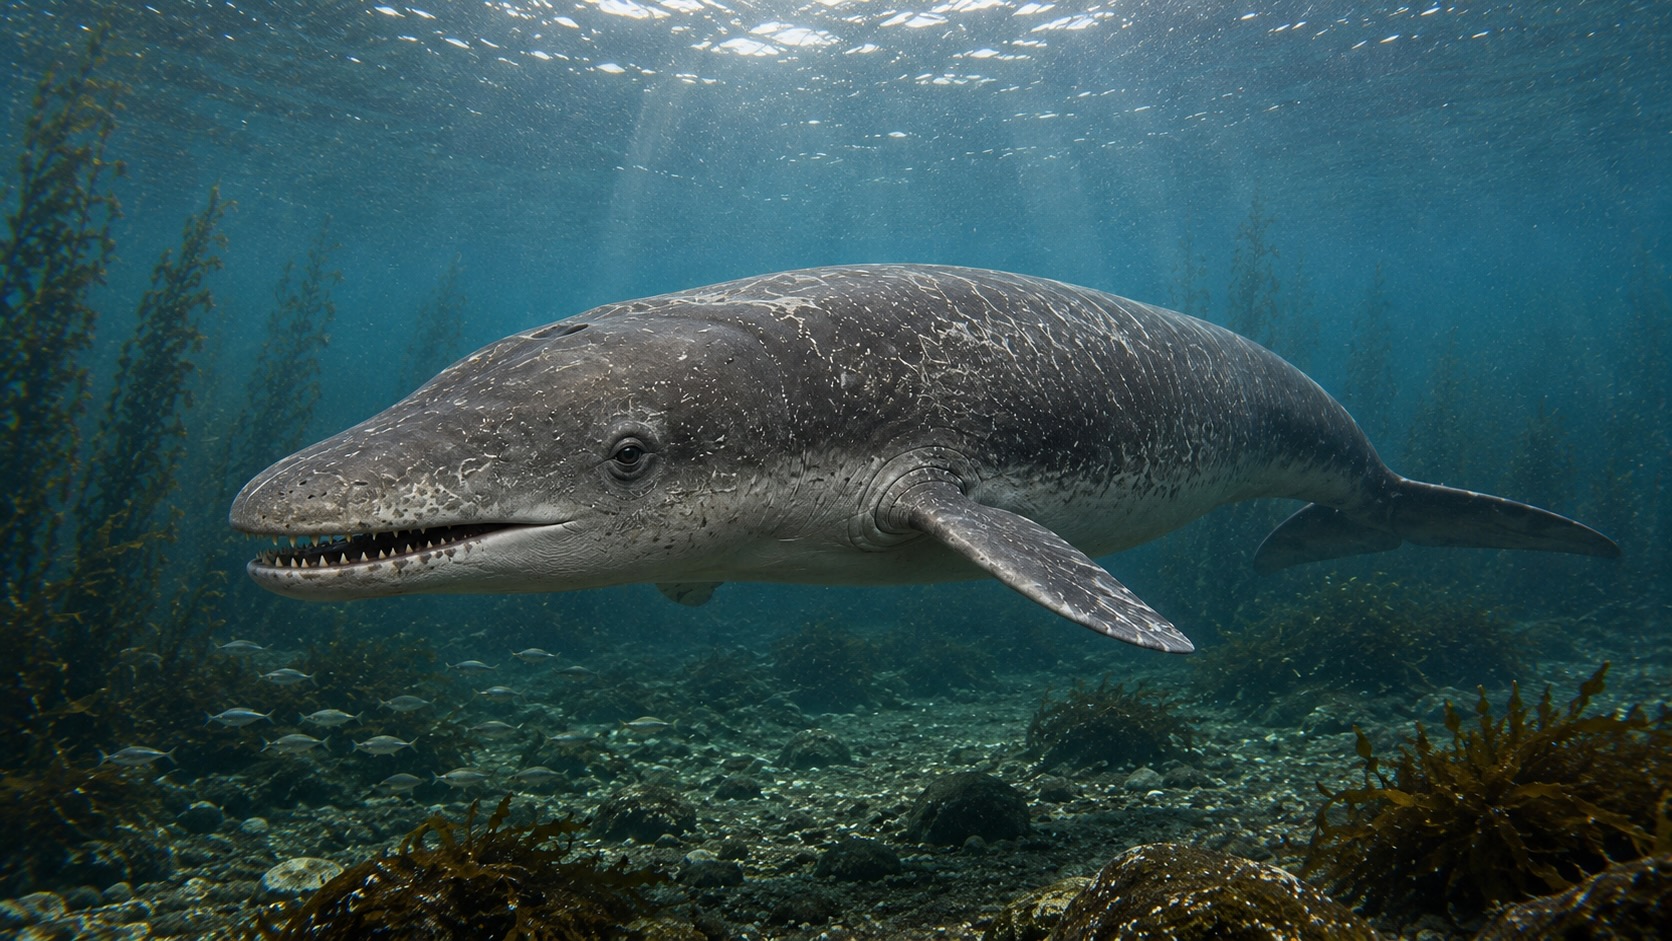
Eoseenin arkaaisista valaista, kuten Basilosauruksesta, kehittyivät oligoseenilla kaksi nykyistä valasryhmää: hetulavalaat ja hammasvalaat. Aetiocetus on tässä avainlaji — varhainen hetulavalas, jolla oli vielä hampaat mutta jo hetulan alkumuoto. Se edustaa siirtymää saalistavista valaista siivilöiviin jättiläisiin, jotka suodattavat vedestä pieneliöitä. Samaan aikaan hammasvalaat kehittivät kaikuluotauksen — kyvyn "nähdä" äänellä veden alla — joka on yhä nykyisten delfiinien ja valaiden tärkein aisti. Molemmat nykyvalaiden päähaarat saivat siis alkunsa oligoseenin merissä.
Valaanhetulan synty oli yksi merkittävimmistä muutoksista koko merten historiassa. Hetula on sarveisainetta olevia levymäisiä rakenteita, jotka toimivat jättimäisenä siivilänä: valas ottaa suuhunsa valtavan määrän vettä ja planktonia ja puristaa veden ulos hetulan läpi, jolloin ravinto jää suuhun. Tämä ruokintatapa mahdollisti valaiden kasvaa historian suurimmiksi eläimiksi koskaan — nykyinen sinivalas on suurempi kuin mikään dinosaurus. Aetiocetuksen kaltaiset varhaiset lajit, joilla oli sekä hampaita että hetulan alkumuoto, osoittavat, kuinka tämä mullistava sopeutuma kehittyi vaiheittain. Viilenevät, ravinteikkaat oligoseenin meret, joissa planktonia oli runsaasti, tarjosivat täydelliset olosuhteet siivilöivien jättiläisten synnylle.
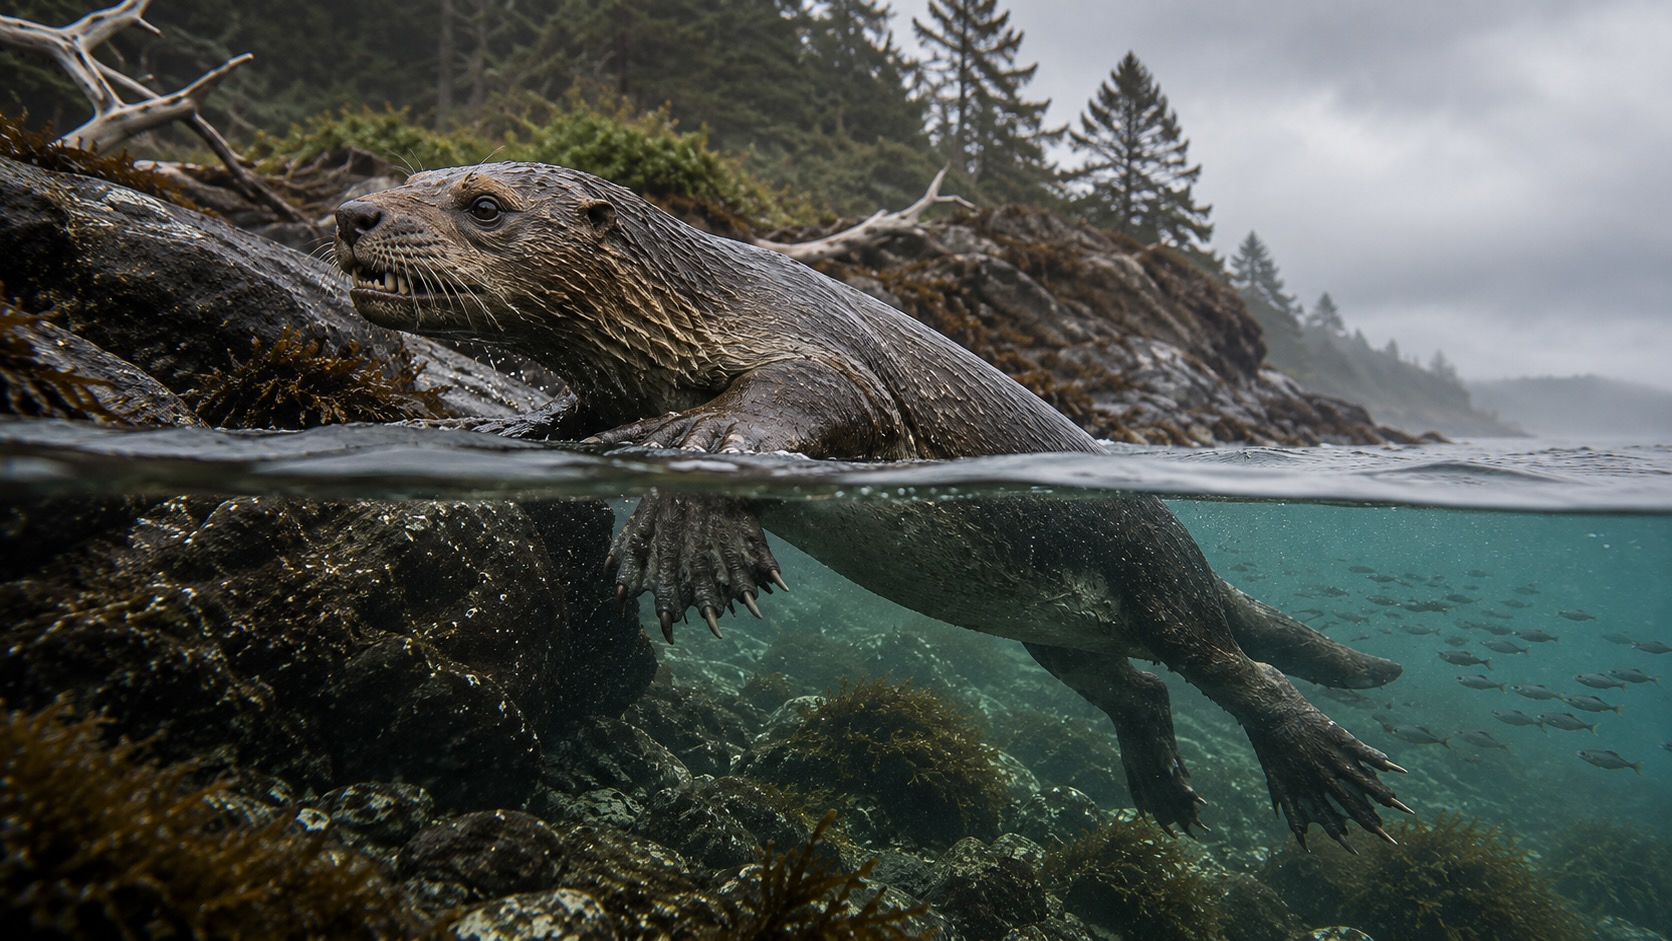
Toinen merten mullistus oli eväjalkaisten eli hylkeiden, merileijonien ja mursujen synty. Enaliarctos, joka eli myöhäisellä oligoseenilla nykyisen Kalifornian rannikolla, on vanhin tunnettu eväjalkainen. Toisin kuin nykyiset hylkeet, se ui käyttäen sekä etu- että takaraajojaan, ja se pystyi vielä liikkumaan sujuvasti maalla. Enaliarctos on kaikkien nykyisten hylkeiden, merileijonien ja mursujen esi-isä — se aloitti nisäkkäiden kolmannen suuren paluun mereen valaiden ja merilehmien jälkeen.
Enaliarctos edustaa vasta hylkeiden matkan alkua. Sillä oli jo eväksi muuttuneet raajat, mutta se pystyi yhä liikkumaan sujuvasti maalla ja luultavasti nousi rannoille lepäämään ja lisääntymään — aivan kuten nykyiset hylkeet ja merileijonat tekevät. Eväjalkaiset polveutuvat karhumaisista petoeläimistä, ja niiden paluu mereen tapahtui huomattavasti myöhemmin kuin valailla. Tämä osoittaa, kuinka meri veti nisäkkäitä puoleensa yhä uudelleen: aina kun rannikkovesissä oli runsaasti kalaa ja muuta ravintoa, jokin maaeläinlinja alkoi ennen pitkää erikoistua sen hyödyntämiseen. Enaliarctoksesta kehittyisivät lopulta kaikki nykyiset hylkeet norsuhylkeistä kotihylkeisiin.
Merten huippupetoja olivat oligoseenilla suuret hait. Otodus-suvun hait kasvoivat yhä suuremmiksi ja kehittyivät kohti myöhempien aikakausien jättihai megalodonia. Samalla katosi hiljaisuudessa yksi vanha selviytyjä: choristoderit, gaviaalimaiset makean veden matelijat, jotka olivat selvinneet dinosaurusten sukupuutosta, kuolivat lopulta sukupuuttoon varhaisella oligoseenilla ilmaston viiletessä.
Oligoseenin meret olivat siis modernisoitumisen näyttämö aivan kuten maakin. Valaiden jakautuminen hetula- ja hammasvalaisiin loi pohjan nykyisille valasryhmille — toisaalta valtaville siivilöiville jättiläisille kuten sinivalaalle, toisaalta älykkäille, kaikuluotaaville hammasvalaille kuten delfiineille ja miekkavalaille. Ensimmäiset hylkeet aloittivat oman menestystarinansa, joka johtaisi nykyisiin runsaslukuisiin hylje- ja merileijonakantoihin. Näin oligoseeni oli merten kannalta yhtä ratkaiseva käännekohta kuin maalla: se aikakausi, jolloin nykyiset merinisäkkäät saivat alkunsa ja valtameret alkoivat muistuttaa niitä, jotka tunnemme tänään.
Tiesitkö — Nisäkkäät palasivat mereen kolme kertaa
Oligoseeniin mennessä nisäkkäät olivat vallanneet meren peräti kolmella erillisellä kerralla. Ensin tulivat valaat, jotka lähtivät sorkkaeläinten haarasta eoseenilla. Sitten merilehmät, jotka polveutuivat norsujen sukulinjasta. Ja lopulta oligoseenilla eväjalkaiset eli hylkeet, merileijonat ja mursut, jotka kehittyivät petoeläinten haarasta. Kolme täysin eri alkuperää olevaa nisäkäslinjaa päätyi itsenäisesti samaan ratkaisuun — paluuseen mereen. Tämä on huikea esimerkki konvergentista evoluutiosta: kun meressä on runsaasti ravintoa, luonto löytää tien sen hyödyntämiseen yhä uudelleen, eri suunnista.
Missä oligoseeni kirjoitettiin — White River Badlands
Suuri osa siitä, mitä oligoseenista tiedetään, on peräisin yhdestä maailman rikkaimmista fossiilialueista: White River Badlandsista Etelä-Dakotan ja Nebraskan alueella. Näiden karujen, uurteisten kalliomaisemien kerrostumista on löydetty valtava määrä oligoseenin nisäkkäitä — oreodontteja, entelodontteja, nimravideja, hevosia, kameleja ja sarvikuonoja — usein niin täydellisesti säilyneinä, että aluetta kutsutaan yhdeksi paleontologian aarreaitoista. Se on oligoseenin vastine paleoseenin San Juanin altaalle ja eoseenin Messelille.
White River Badlandsin arvo on siinä, että se tallentaa kokonaisen ekosysteemin, ei vain yksittäisiä lajeja. Sen kerrostumista voi lukea, kuinka tasankojen eläinyhteisö toimi: mitkä lajit olivat runsaimpia, mitkä harvinaisia, ketkä saalistivat ketä. Runsaat oreodonttilaumat, niitä jahtaavat nimravidit, laiduntavat hevoset ja kamelit sekä tasankojen jättiläiset entelodontit muodostavat yhdessä elävän kuvan oligoseenin maailmasta. Juuri tällaiset poikkeuksellisen rikkaat löytöpaikat tekevät menneisyydestä ymmärrettävän — ne eivät näytä vain yksittäisiä eläimiä vaan kokonaisen, toimivan luonnon.
Oligoseeni oli myös aika, jolloin monet vanhat eläinlinjat päättivät pitkän taipaleensa. Multituberkulaatit — jyrsijämäiset nisäkkäät, jotka olivat nisäkkäiden pisimpään elänyt ryhmä koskaan, yli 120 miljoonaa vuotta — kuolivat lopulta sukupuuttoon oligoseenilla, kun tehokkaammat jyrsijät voittivat kilpailun. Samoin katosivat eoseenin loppupuolella kukoistaneet brontotheerit, ja arkaaiset kreodontit väistyivät vähitellen nykyisten petoeläinten tieltä. Näin oligoseeni oli sekä uuden alkua että vanhan loppua — silta arkaaisesta maailmasta moderniin.
Multituberkulaattien katoaminen ansaitsee erityismaininnan, sillä se päätti nisäkkäiden pisimmän menestystarinan. Nämä pienet, jyrsijämäiset eläimet olivat ilmestyneet jo jurakaudella, eläneet dinosaurusten rinnalla koko niiden valtakauden ajan, selvinneet suuresta sukupuutosta ja kukoistaneet paleoseenilla. Yli sadan miljoonan vuoden ajan ne olivat olleet yksi maapallon menestyneimmistä nisäkäsryhmistä. Mutta kun oikeat jyrsijät — hiiret, oravat ja niiden sukulaiset — kehittyivät ja levisivät, ne osoittautuivat tehokkaammiksi samassa ekologisessa roolissa. Vähitellen jyrsijät syrjäyttivät multituberkulaatit, jotka lopulta katosivat oligoseenilla. Se on muistutus siitä, että evoluutiossa mikään menestys ei ole pysyvä: jopa yli sadan miljoonan vuoden valtakausi voi päättyä, kun paremmin sopeutunut kilpailija ilmestyy.
Ensimmäiset apinat ja tie kohti ihmistä
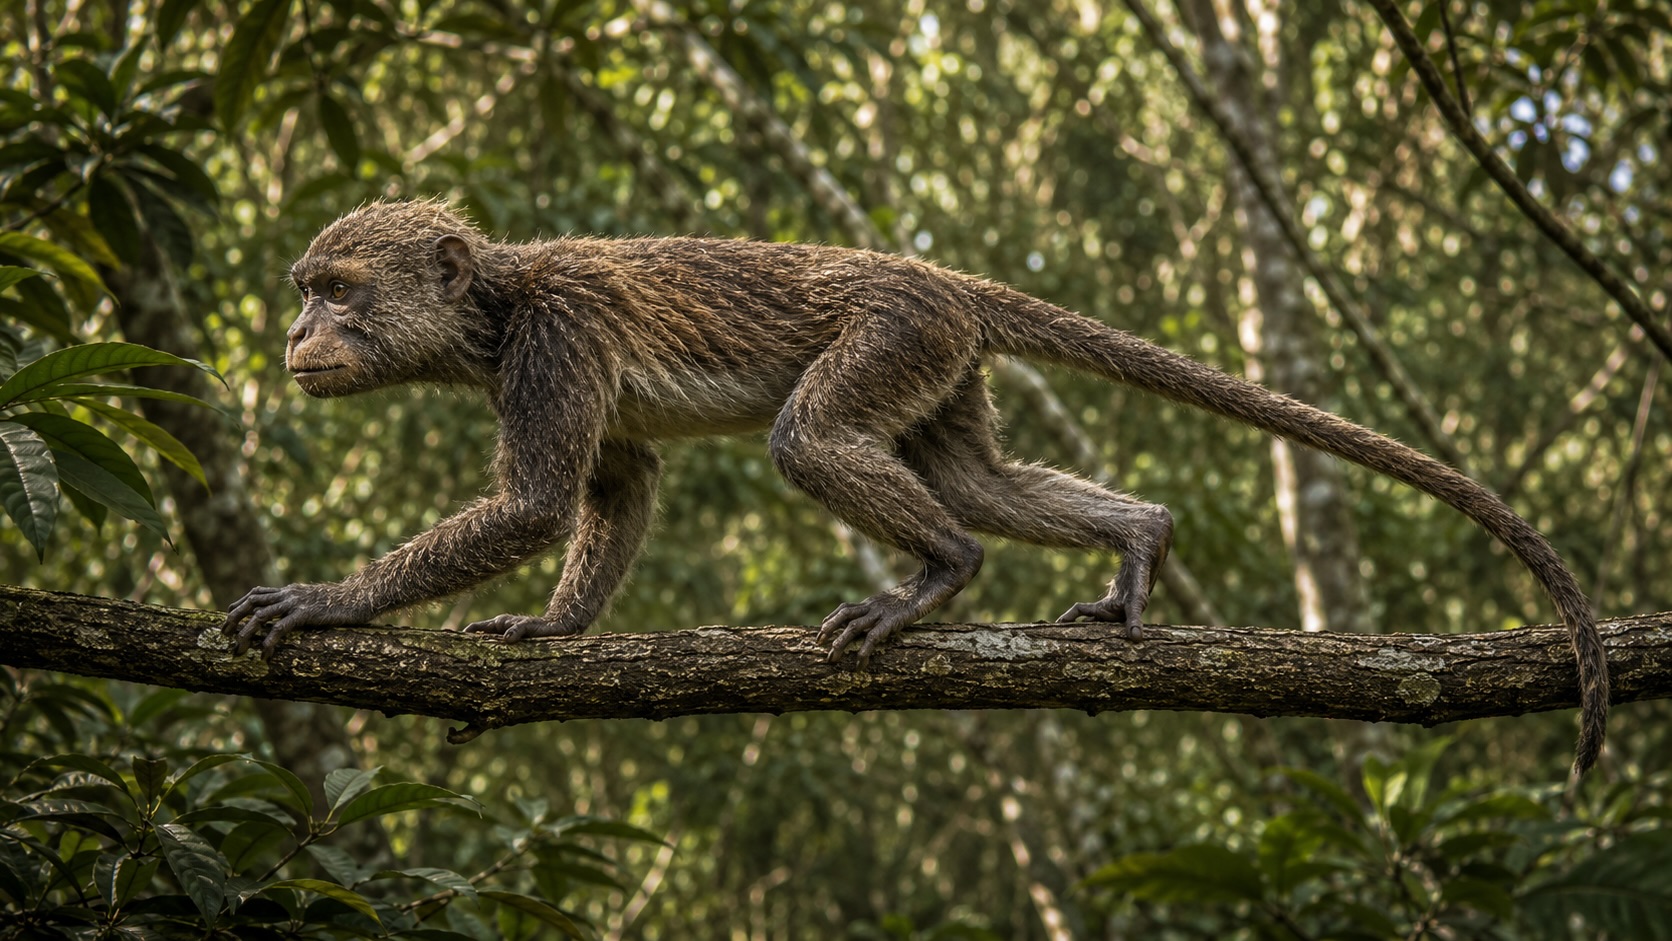
Oligoseenikauden trooppisissa metsissä — jotka yhä peittivät Afrikan ja osan Aasiaa — tapahtui hiljainen mutta ratkaiseva evoluutiokäänne. Ensimmäiset varsinaiset apinat ilmestyivät, erottuen vanhemmista kädellisistä kehittyneemmällä näköaistillaan, suuremmilla aivoillaan ja sosiaalisella käyttäytymisellään.
Tämä käänne oli meille ihmisille kaikkein tärkein koko oligoseenin tapahtumista. Vaikka aikakauden näyttävimmät eläimet olivat jättimäisiä sarvikuonoja ja pelottavia petolintuja, sen merkittävin perintö kätkeytyi trooppisten metsien latvustoihin: pieniin apinoihin, jotka aloittivat kehityskulun kohti ihmistä. Nämä apinat erottuivat aiemmista kädellisistä monin tavoin — niillä oli suuremmat aivot, tarkempi väri- ja syvyysnäkö sekä monimutkaisempi sosiaalinen elämä. Juuri nämä piirteet, jotka kehittyivät hedelmien etsintään ja lauman elämään metsän latvoissa, loivat pohjan sille älylle ja yhteisöllisyydelle, joka lopulta määrittäisi meidät ihmiset.
Aegyptopithecus, noin 30 miljoonaa vuotta sitten Egyptin Fayumista löydetty kädellinen, on yksi varhaisimmista tunnetuista apinoiden esi-isistä. Se oli kissan kokoinen, puissa elävä hedelmänsyöjä, jolla oli eteenpäin suuntautuvat silmät ja tarttumakykyiset kädet. Aegyptopithecuksesta — tai sen kaltaisista kädellisistä — kehittyivät myöhemmin sekä vanhan maailman apinat, ihmisapinat että lopulta ihmiset.
Aegyptopithecus on meille erityisen merkittävä, koska se sijaitsee lähellä sitä haaraa, josta ihmisapinat ja ihminen kehittyivät. Se oli kissan kokoinen, mutta sen aivot olivat jo suhteessa suuremmat kuin varhaisemmilla kädellisillä, ja sen silmät olivat suunnattu eteenpäin, mikä antoi tarkan syvyysnäön — piirre, joka on olennainen puissa liikkumiselle ja jota me ihmiset olemme perineet. Se eli laumoissa ja söi pääasiassa hedelmiä. Fossiiliaineiston perusteella koiraat ja naaraat erosivat kooltaan, mikä viittaa monimutkaiseen sosiaaliseen käyttäytymiseen. Näistä varhaisista apinoista alkoi pitkä kehityskulku, joka johtaisi gibboneihin, orankeihin, gorilloihin, simpansseihin ja lopulta ihmiseen.
On huomionarvoista, kuinka pitkä ja mutkitteleva tie näistä oligoseenin pikkuapinoista ihmiseen oli. Aegyptopithecuksen jälkeen kesti vielä yli 25 miljoonaa vuotta ennen kuin ensimmäiset ihmisen kaltaiset olennot ilmestyivät, ja tuona aikana kädelliset kokeilivat lukemattomia elämäntapoja ja muotoja. Suurin osa näistä linjoista kuoli sukupuuttoon, ja vain harvat johtivat nykyisiin lajeihin. Silti jokainen askel tuolla tiellä — suurenevat aivot, tarkentuva näkö, monimutkaistuva sosiaalinen elämä — vei kohti sitä älyä ja yhteistyökykyä, joka lopulta erottaisi ihmisen muusta luonnosta. Kun katsomme oligoseenin metsien pieniä apinoita, katsomme oman tarinamme aivan ensimmäisiä lukuja.
Samaan aikaan Etelä-Amerikassa, joka oli oligoseenilla erillinen saarimanner, kehittyi oma kädellisten ryhmänsä: leveänenäiset apinat. Ne pääsivät mantereelle todennäköisesti kellumalla kasvillisuuslautoilla Afrikan rannikolta — uskomaton mutta fossiilitodisteiden tukema matka yli tuolloin kapeamman Atlantin. Näin apinat levisivät kahdelle mantereelle ja aloittivat kehityksensä, joka lopulta johtaisi ihmisapinoihin ja ihmiseen.
Leveänenäisten apinoiden matka Atlantin yli on yksi evoluutiohistorian uskomattomimmista tarinoista. Oligoseenilla Atlantti oli kapeampi kuin nykyään, mutta silti kyseessä oli satojen kilometrien merimatka. Todennäköisin selitys on, että pieni ryhmä apinoita joutui myrskyn irrottamalle kasvillisuuslautalle — kokonaiselle rannikon irronneelle kasvipaakulle — ja ajautui merivirtojen mukana Afrikasta Etelä-Amerikkaan. Vaikka tällainen matka kuulostaa epätodennäköiseltä, geologisessa ajassa jopa harvinaiset tapahtumat toteutuvat lopulta, ja fossiilitodisteet vahvistavat, että Etelä-Amerikan apinat todella polveutuvat afrikkalaisista esi-isistä. Nämä "merenkävijät" antoivat alkunsa kaikille nykyisille Amerikan apinoille hämähäkkiapinoista tamariineihin.
Oligoseenin loppu — tie kohti modernia maailmaa
Oligoseeni oli siirtymäaikakausi. Sen alussa maailma oli vasta toipumassa eoseenin lopun viilenemisestä, mutta sen lopussa, noin 23 miljoonaa vuotta sitten, planeetta alkoi jo muistuttaa nykyistä — modernit nisäkäsryhmät, avoimet maisemat, viileämpi ilmasto. Toisin kuin monet edeltäjänsä, oligoseeni ei päättynyt joukkotuhoon. Sen sijaan elämä jatkoi monimuotoistumistaan ja sopeutumistaan — tasaisesti ja vääjäämättömästi kohti mioseenikautta ja meidän aikaamme.
Oligoseenin merkitys onkin juuri sen roolissa siltana. Sen alussa maapallo oli vielä osittain arkaainen — täynnä outoja jättiläisiä ja sukupuuttoon tuomittuja ryhmiä — mutta sen loppuun mennessä maailmassa oli jo hevosia, kameleja, sarvikuonoja, kissoja, koiria, apinoita ja valaita, jotka olivat tunnistettavasti nykyisten sukulaisia. Tässä osiossa katsomme, mitä oligoseenin jälkeen tapahtui: kuinka ilmasto jatkoi viilenemistään, mantereet asettuivat paikoilleen ja elämä kulki kohti sitä maailmaa, jossa me itse elämme — mukaan lukien ne suuret sukupuutot, jotka ovat muovanneet nykyistä luontoa aina näihin päiviin asti.
Ilmasto jatkaa viilenemistään
Oligoseenin ilmasto oli jo selvästi viileämpi kuin eoseenin, mutta viileneminen jatkui koko aikakauden ajan. Antarktiksen jääpeite vakiintui ja laajeni, ja ilmakehän hiilidioksidipitoisuus jatkoi hidasta laskuaan. Oligoseenin alussa tapahtui niin sanottu Oi-1-glasiaatio (noin 33,5 mvs), intensiivinen kylmä jakso. Yleinen trendi oli jatkuva jäähtyminen, joka jatkuisi mioseenikauden ajan ja johtaisi lopulta pleistoseenin jääkausiin — ja siihen viileähköön ilmastoon, jossa nykyiset ihmiset elävät.
Oi-1-glasiaatio oli tärkeä käännekohta, koska se merkitsi Antarktiksen mannerjäätikön vakiintumista pysyväksi. Ennen sitä maapallolla oli ollut jäätön kymmeniä miljoonia vuosia; sen jälkeen napajää on ollut osa maailmaa lähes yhtäjaksoisesti. Tämä muutti valtamerten kiertoa, laski merenpintaa ja teki ilmastosta kuivemman ja vuodenaikaisemman. Juuri nämä olosuhteet suosivat ruohotasankojen leviämistä ja niille sopeutuneiden eläinten menestystä. Oligoseenin viileneminen ei siis ollut vain taustailmiö vaan suoraan syy sille, että maailma muuttui metsien hallitsemasta avoimien tasankojen maailmaksi.
Mantereet ottavat lopullisen muodon
Oligoseenin aikana mantereet liikkuivat lähelle nykyisiä paikkojaan. Intia jatkoi työntymistään pohjoiseen ja korotti Himalajaa, Afrikka lähestyi Eurooppaa ja muinainen Tethys-meri kapeni. Australia oli irtautunut Antarktiksesta ja ajautui pohjoiseen kohti tropiikkia. Pohjois- ja Etelä-Amerikkaa ei vielä yhdistänyt maakannas — Panaman kannas muodostuisi vasta paljon myöhemmin, plioseenikaudella, mikä sallisi kauhulintujen ja nisäkkäiden suuren kohtaamisen.
Panaman kannaksen synty olisi yksi kenotsooisen ajan dramaattisimmista tapahtumista, ja sen siemenet kylvettiin oligoseenin mannerliikkeissä. Kun Pohjois- ja Etelä-Amerikka lopulta yhdistyivät, seurasi valtava eläimistön sekoittuminen, jota kutsutaan "suureksi amerikkalaiseksi vaihdoksi". Pohjoisen nisäkäspedot — kissat, koirat ja karhut — vaelsivat etelään, ja monet Etelä-Amerikan eristyksissä kehittyneet ryhmät, kuten kauhulinnut ja omalaatuiset kavioeläimet, kuolivat sukupuuttoon kilpailun myötä. Samalla eteläiset lajit, kuten laiskiaiset ja vyötiäiset, levisivät pohjoiseen. Oligoseenilla tämä kohtaaminen oli vielä kaukana tulevaisuudessa, mutta mantereiden hidas liike oli jo asettamassa näyttämöä sille.
Sukupuutot oligoseenin jälkeen — aikajana
Vaikka oligoseeni itse päättyi ilman dramaattista joukkotuhoa, sen jälkeen on tapahtunut useita merkittäviä sukupuuttoaaltoja. Yksikään niistä ei ole yltänyt Big Five -tasolle — ainakaan vielä — mutta yhdessä ne ovat muuttaneet maapallon eläimistöä yhtä paljon kuin monet aiemmat geologiset katastrofit.
14 miljoonaa vuotta sitten — keski-mioseenin häiriö. Ilmasto viileni jälleen, ja Antarktiksen jääpeite kasvoi merkittävästi. Trooppiset metsät vetäytyivät edelleen, ja ruohotasangot levisivät yhä laajemmalle. Eläimistö muuttui asteittain — moni varhaisen kenotsooisen ajan ryhmä hävisi pysyvästi. Tämä oli myös aikaa, jolloin ruohoa syövät eläimet — hevoset, märehtijät ja norsut — kokivat suuren monimuotoistumisen, kun avoimet maisemat tarjosivat rajattomasti ravintoa niille, jotka osasivat sitä hyödyntää.
2,58 miljoonaa vuotta sitten — jääkaudet alkavat. Maapallo astui kvaternäärikauteen, jolloin pohjoisilla mantereilla alkoi vuorotella jääkausia ja lämpimämpiä interglasiaaleja noin 100 000 vuoden sykleissä. Pohjois-Amerikan ja Euroopan jäätiköt kasvoivat tuhansien metrien paksuisiksi. Tämä iski rajusti niihin lajeihin, jotka olivat sopeutuneet tasaisempaan lämpöilmastoon. Samalla jääkaudet loivat kuitenkin uudenlaisia elinympäristöjä — kylmiä mammuttiaroja, joilla kehittyi omanlaisensa turkkinen suureläimistö: villamammutit, villasarvikuonot ja jättipeurat.
50 000–11 700 vuotta sitten — kvaternäärinen joukkotuho. Pleistoseenin lopun megafauna-sukupuutto vei mukanaan jättimäisten nisäkkäiden valtakauden: mammutit, mastodontit, sapelihammaskissat, jättilaiskiaiset, lyhytkuonokarhut ja Australian jättimarsupiaalit kuten Diprotodon. Yhteensä noin 80 % yli tonnin painoisista nisäkkäistä hävisi. Tutkimukset (Sandom ym. 2014, Proceedings of the Royal Society B) osoittavat, että pääsyy oli ihminen, ei ilmasto: sukupuuttojen ajoitus seuraa tarkasti Homo sapiensin levittäytymistä mantereille — Australiaan noin 65 000 vuotta sitten, Amerikkaan noin 15 000 vuotta sitten. Afrikka ja Aasia, joissa ihminen kehittyi, säilyivät paremmin, koska eläimet olivat ehtineet sopeutua ihmiseen miljoonien vuosien ajan.
Tämä megafaunan sukupuutto muutti maailmaa perusteellisesti. Vielä muutama kymmenentuhatta vuotta sitten lähes joka mantereella vaelsi norsujen kokoisia tai suurempia eläimiä: mammutteja Euraasiassa ja Pohjois-Amerikassa, jättilaiskiaisia ja autonkokoisia glyptodontteja Etelä-Amerikassa, jättimarsupiaaleja ja valtavia liskoja Australiassa. Kun nämä katosivat, kokonaiset ekosysteemit muuttuivat — suuret kasvinsyöjät olivat muokanneet maisemaa laiduntamalla ja levittämällä siemeniä, ja niiden häviäminen jätti pysyvän jäljen kasvillisuuteen. Nykyinen Afrikan savanni norsuineen ja sarvikuonoineen on itse asiassa viimeinen rippeensä siitä megafaunan maailmasta, joka vielä äskettäin peitti koko planeetan.
11 700 vuotta sitten – nykyhetki — holoseenin sukupuutto eli "kuudes joukkotuho". Tämä on käynnissä juuri nyt. Nykyinen lajien sukupuuttotahti on arvioitu 100–1 000 kertaa korkeammaksi kuin geologinen taustanopeus, ja monet tutkijat (Ceballos ym. 2015, Science Advances) puhuvat avoimesti kuudennesta joukkotuhosta. Syyt ovat tällä kertaa täysin ihmisperäisiä: elinympäristöjen tuho, ilmastonmuutos, ylikalastus, vieraslajit ja saastuminen. Toisin kuin aiemmat joukkotuhot, tämä on ensimmäinen, jonka aiheuttaja kykenee tietoisesti vaikuttamaan sen kulkuun.
Tiesitkö — Elämme yhä kenotsooisella ajalla
Paleoseeni, eoseeni ja oligoseeni ovat kaikki osa kenotsooista aikaa eli "nisäkkäiden aikakautta", joka alkoi dinosaurusten sukupuutosta 66 miljoonaa vuotta sitten ja jatkuu yhä. Me emme siis elä dinosaurusten jälkeisessä maailmassa jonain erillisenä aikana — olemme itse osa samaa katkeamatonta tarinaa, joka alkoi tuhkasta paleoseenilla. Oligoseenin ruohotasangot, ensimmäiset apinat ja modernit pedot ovat suoria esivaiheita sille maailmalle, jossa elämme. Ja kuudes joukkotuho, joka on käynnissä, on tämän saman tarinan uusin luku — luku, jonka lopputulos on yhä kirjoittamatta.
Mikä tämän jälkeen — mioseeni ja modernit ekosysteemit
Oligoseenin lopussa, noin 23 miljoonaa vuotta sitten, maapallo siirtyi mioseenikauteen. Tämä ei ollut dramaattinen raja vaan asteittainen siirtymä, jossa oligoseenilla alkaneet kehityskulut jatkuivat ja voimistuivat. Ruohotasangot levisivät edelleen, ihmisapinat monimuotoistuivat Afrikassa, savannit muodostuivat ja modernit nisäkäsryhmät vakiintuivat.
Mioseeni oli monella tapaa oligoseenin aloittaman kehityksen huipentuma. Ruohotasangoista tuli maailman hallitseva elinympäristö, ja niiden myötä kehittyivät nopeat, korkeahampaiset laiduntajat sekä laumapedot, jotka niitä jahtasivat. Afrikan savanneilla ihmisapinat kokeilivat uusia elämäntapoja, ja niiden joukosta erottui lopulta se haara, joka kehittyi ihmisen suvuksi. Kun mioseeni vaihtui plioseeniksi ja lopulta pleistoseeniksi, näyttämö oli valmis ihmisen tulolle. Näin oligoseenin ruohotasangoilta johtaa suora linja aina niihin afrikkalaisiin savanneihin, joilla ensimmäiset ihmiset ottivat askeleensa.
Oligoseeni loi siis perustan kaikelle sille maailmalle, jossa me elämme. Nopeilla pedoilla, ensimmäisillä apinoilla, levenneillä ruohotasangoilla ja ensimmäisillä modernin kaltaisilla kissoilla ja koirilla luotiin pohja mioseenin ihmisapinoille — ja lopulta meille itsellemme. Kun katsot nykyistä savannia, jossa antiloopit laiduntavat ja leijonat saalistavat, näet itse asiassa kuvan, jonka juuret ovat oligoseenin ruohotasangoissa.
Tähän päättyy matkamme dinosaurusten maailman läpi — prekambrin ensimmäisistä eliöistä paleotsooisen ajan merten kautta dinosaurusten mahtavaan valtakauteen ja lopulta nisäkkäiden nousuun oligoseenin tasangoilla. Jokainen aikakausi on rakentanut edellisen päälle: sukupuutot ovat raivanneet tilaa uudelle, ja elämä on aina täyttänyt tyhjentyneet lokerot uusilla, hämmästyttävillä muodoilla. Oligoseenin päättyessä maailma oli jo tunnistettavasti moderni, ja siitä eteenpäin tarina kulkee mioseenin savannien ja jääkausien mammuttien kautta aina ihmisen syntyyn. Me olemme tämän neljän miljardin vuoden tarinan viimeisin luku — ja samalla ensimmäinen laji, joka kykenee sen lukemaan ja ymmärtämään. Dinosaurusten maailma ei siis ole vain menneisyyttä: se on kertomus siitä, mistä me itse tulemme.